domingo, 5 de mayo de 2013

Diferencias entre Australopithecus, Paranthropus, Homo y Kenyapithecus


Australopithecus
Paranthropus
Homo
Kenyapithecus
Bipedación
Conserva la capacidad de trepa
Bipedación más afirmada.


Cráneo
380-500 cc.
Cresta temporal-nucal.
550 cc.
Cresta sagital y temporal-nucal.
1.100 cc.
Huesos más gruesos.
400-500 cc.
Alargado.
Prognatismo
Acusado.
Acusado
Rostro reducido.
Cara plana, un poco porgnata.
Arcadas dentales
En forma de U o V con las ramas más o menos abiertas.
Masticación potente.
Premolares y molares muy grandes y robustos con esmalte muy grueso.
Forma de U.
Piezas detarias pequeñas. Notable tamaño de la articulació temporal-mandibular.
Tronco
En forma de cono.
6 vértebras lumbares.

5 vértebras lumbares.

Extremidades superiores.
Fosa olecraneana profunda.
Pulgar no oponible.
Brazos más cortos.
Pulgar oponible.
Pulgar oponible.

Extremidades inferiores
Piernas cortas.
Rodilla flexible.
Dedo gordo divergente.
Piernas más largas.
Alargamiento.

Estatura


Más altos.

Dimorfismo sexual
Poco pronunciado.
Muy pronunciado.
Poco pronunciado.

Alimentación
Omnívoro
Herbívoro.
Omnívoro. Carnívoro.

Hábitat
Arborícola y terrestre.
Terrestre.
Terrestre.


Te puede interesar:

sábado, 4 de mayo de 2013

Mioceno Inferior (hace 24-16 Ma). Radiación de los Hominoidea.

Durante el Mioceno Inferior, los hominoideos se separaron en varias ramas evolutivas, algunas de las cuales fueron (de más antigua a más moderna filogenéticamente):
  • Familia Proconsulidae (Leakey, 1963). Puede que miembros de esta familia fuesen los antepasados comunes a todos los grandes simios y al ser humano. Son los primeros hominoideos que aparecen en el registro fósil. Los clasificamos entre los hominoideos por la clara presencia de dos sinapomorfias: la pauta Y-5 y la movilidad articulatoria. Además, no tenían cola (Russo, 2015), sus ojos miraban de frente, su morro era más corto que el de los demás simios y su cerebro un poco mayor. Se movían como los cercopitecos, apoyando las cuatro patas por encima de las ramas de los árboles (pronógrados). Vivían en bosques lluviosos. El esmalte de sus dientes era fino, lo que sugiere una dieta frugívora. Se distinguen las subfamilias:
      • Proconsulinae.
        • Los hominoideos del género Proconsul son los más antiguos descubiertos. Los fósiles de Losidok, norte de Kenya, datan de hace 27 Ma, todavía en el Oligoceno Tardío. Los fósiles más recientes datan de hace 17 Ma.
        • Para Ashley Bales (2013), la morfología basicraneal primitiva de Proconsul lo sitúa entre los catarrinos y no entre los hominoideos.
      • Nyanzapithecinae.
        • El ejemplar más antiguo corresponde al género Rukwapithecus, hallado en Rukwa, Tanzania, y datado en 25.2 Ma. A finales del Mioceno Inferior, encontramos restos atribuidos a esta subfamilia en el Sur de África.
Cráneo de algunos hominoideos, mostrando posibles cambios a lo largo del tiempo. Proconsul estaría cerca del morfotipo ancestral de los hominoideos. David R. Begun, modificado de Kordos y Begun (2001).

  • Familia Afropithecidae (Andrews, 1992). Definida en base a hallazgos en el norte de Kenia datados en 17,5-17 Ma (Leakey y Walker 1997). Presenta un mosaico de caracteres primitivos y derivados. Leakey y Walker (1997) han sugerido que su inusual cara primitiva puede estar relacionada con una adaptación al consumo de semillas de scerocarpa. Es precisamente la anatomía craneodental la principal diferencia con Proconsulidae. Son candidatos a una migración hacia Eurasia, donde hace 17 Ma aparecen hominoideos con características dentales más modernas.
  • La familia Hylobatidae, separada de la rama que daría origen a los humanos, según las evidencias genéticas, hace 18 Ma.
    • Los gibones muestran un aparato locomotor muy avanzado y especializado en la braquiación. Por el contrario, su dentadura es primitiva y consumen preferentemente frutos y yemas, como la mayoría de los primates. No son muy amigos de caminar por el suelo pero cubren cortas distancias de forma bípeda.
  • La familia Hominidae que daría lugar a las subfamilias Ponginae y Homininae. Esta rama evolutiva se caracterizará por una progresiva adaptación a la vida en el suelo.
No se han hallado fósiles de Hylobatidae ni de Hominidae datados en el Mioceno Inferior, pero inferimos su existencia en virtud de las evidencias genéticas.

Hominoideos del Mioceno. David R. Begun.
África, Arabia y Eurasia en la transición entre el Oligoceno y el Mioceno. Las placas africana y arábiga estuvieron unidas durante el Mioceno Inferior.

CUADRO RESUMEN

Clima
AFRICA
EUROPA Y ASIA MENOR
ASIA
Mioceno Superior (10-5 Ma)
Crisis vallesiense. Empobrecimiento faunístico
Hominini
Panini
Gorillini
Extinción de hominoideos
Gibones.
Orangutanes.
Mioceno Medio (16-10 Ma)
Descenso de temperaturas. Aridez en África y mayor humedad en Europa
Kenyapithecus
Dryopithecidae
Sivapithecus
Mioceno Inferior (24-16 Ma)
Aumento de temperaturas y humedad
Proconsul, Afropithecus

Hominoideos en la península arábiga
Oligoceno final
Frío. Primates constreñiodos a zonas ecuatoriales.
Surgen los hominoideos


Te puede interesar:

Rasgos derivados de los Hominini

Dada la ausencia de antecesores comunes conocidos de gorilas, chimpancés y humanos, se han definido los rasgos que caracterizan a los Hominini a partir del estudio comparativo de unos pocos fósiles datados entre 7-4 Ma y de las especies antropomorfas actuales.
Ninguno de estos rasgos representa una clara sinapomorfia. Algunas especies catalogadas como Hominini carecen de alguno de estos rasgos. Por el contrario, los simios antropomorfos disfrutan de varios de estos rasgos en alguna proporción (por ejemplo, los organgutanes muestran varios rasgos dentales). Ello nos lleva a la conclusión que los Hominini no son un grupo monofilético. A lo largo de la corta historia de las investigaciones paleoantropológicas, se ha considerado la bipedia (total o parcial en un grado avanzado) como la carácterística distintiva de los Hominini. Cuando solo disponemos de elementos craneales, los caninos planos, pequeños, con forma de pala, los superiores desgastados por la punta y un esmalte grueso, nos indican que estamos ante un fósil de homínido.
Otra cuestión importante que hay que destacar es que en la evolución de los Hominini no existe un único vector direccional, sino que han actuado muchas fuerzas de forma simultánea, produciendo seres con rasgos en mosaico (algunos avanzados junto con otros arcaicos), con aparentes retrocesos en algunas ocasiones. Sobre todo, no se aprecia que el incremento de tamaño del cerebro haya sido el proyecto que dio lugar al ser humano ni que seamos un producto acabado de la Evolución. Los primeros homínidos tenían una masa cerebral comparable a la de un chimpancé y no desarrollaron industrias líticas.
Más bien somos resultado del azar evolutivo sobre unos seres sometidos a grandes presiones para sobrevivir.
Los rasgos diferenciadores de los primeros Hominini corresponden a estrategias de supervivencia en la selva tropical. Parece que estas estrategias no dieron buen resultado al principio y durante millones de años los homínidos estuvieron en peligro de extinción. Pero cuando el clima se hizo más árido y el bosque tropical comenzó a clarear, las adaptaciones homínidas resultaron exitosas y estos seres pudieron expandirse.
Entre estos rasgos, destacan los siguientes:
·         La bipedación.
·         En los machos, la disminución de tamaño de los caninos y la ausencia de desgaste sectorial, lo que indica una menor agresividad en la competencia por las hembras y el territorio.

Aparato locomotor necesario para la bipedación.

La bipedación tiene unos requerimientos físicos que se revelan en el esqueleto postcraneal.
  • Forma de la cadera.
    • Ilio más corto y ancho. Los huesos están curvados hacia delante para formar un cuenco, lo que favorece los movimientos de la marcha y ayuda a la contención de las vísceras.
    • Isquion muy corto, dirigido hacia atrás, lo que aumenta la eficacia de los músculos extensores de la pierna para atrás.
    • El sacro es ancho y está colocado hacia atrás, sirviendo de fijación a la potente masa muscular lumbosacra, encargada de mantener erguida la columna vertebral.
    • Pelvis mucho más corta.
    • Compromiso entre la bipedia y el parto: Distinta anatomía de la cadera en macho y hembra, huesos craneales del feto blandos y nacimiento en estado muy inmaduro.
  • Extremidades inferiores.
    • Huesos rectilíneos.
    • Articulaciones más sólidas y capaces de aguantar la distribución del peso en la posición erecta.
    • Fémur sólido. Alargamiento del cuello del fémur y fuertes abductores para compensar la fuerza de torsión necesaria para mantener el equilibrio sobre un solo pie. Piernas más largas que los brazos.
    • Situación de la rodilla más cerca del eje del cuerpo.
    • Pérdida de la prensilidad en los pies. Pies planos, dedos más cortos y convergentes. Huesos densos. Doble bóveda plantar.
  • Columna en forma de S. Región lumbar relativamente más larga, con ganancia de una vértebra.

Aparato masticatorio.

Los Hominini posemos un aparato masticatorio poco especializado y un esmalte grueso, que nos permite cortar y triturar cualquier tipo de alimento: blando como la fruta o duros como raíces y semillas, pasando por carne, insectos, etc.
  • Dientes
    • Esmalte dental grueso en los molares.
    • Escaso desarrollo de los caninos. Los caninos superiores se desgastan por la punta. Caninos espatulados.
  • Boca retrasada y más pequeña.
  • Articulación del cuello y la base del cráneo en posición central. Los músculos de la nuca van a insertarse al occipucio.
  • Disminución del prognatismo.
  • Reducción del tamaño de los músculos faciales.
  • Adelgazamiento de la musculatura de los labios.
  • Menor tamaño del hocico.
  • Reducción del espacio interdental.
  • Disminución de las mandíbulas y crestas sagitales y desarrollo del mentón.

Otros rasgos distintivos de los Hominini.

  1. Pérdida de pelo, salvo en cabeza, pubis y axilas.
  2. Relación relativamente alta entre la capacidad craneal y volumen o peso del cuerpo. Aumento de la complejidad cerebral (redes neuronales).
  3. Pérdida de una parte del sentido del olfato. La comunicación basada en el olor se sustituye por la expresión facial. Aumenta la corteza motora que rige los músculos faciales y existen células especializdas en la visión de la expresión facial.
  4. Incremento del dimorfismo sexual.
  5. Capacidad de movimiento de las extremidades. Sobre todo, las superiores.
  6. Admisión de celulosa y capacidad de tolerar las toxinas. Posibilidad de consumir carne.
  7. Periodos de gestación prolongados y escaso número de crías. Diferenciación sexual. Inmadurez de las crías (neotenia).
  8. Extremidades que terminan en cinco dedos, con capacidad prensil y uñas. Gran capacidad para el tacto.
    • Mano con el pulgar opuesto.
    • El sapiens ha perdido la mayor parte de la capacidad prensil en los pies.
La moral, el lenguaje o el arte son diferencias funcionales que difícilmente se manifiestan en los fósiles, al igual que una organización social compleja o los mecanismos de comunicación.


Te puede interesar:

Los chimpancés también tienen personalidad

JORG J.M. MASSEN, ALEXANDRA ANTONIDES, ANNE-MARIE K. ARNOLD, THOMAS BIONDA y SONJA E. KOSKI han examinado la audacia, la tendencia de exploración, la persistencia y la utilización de herramientas en 29 chimpancés (Pan troglodytes) en cautividad con repetidos experimentos.

Encontraron que estos rasgos presentan alta repetibilidad temporal y consistencia contextual, lo cual es reflejo de ese constructo sicológico que denominamos personalidad. Las diferencias de personalidad no tienen que ver con el sexo o el rango, pero se atenúan con la edad. Hay una considerable variación entre individuos de la misma edad.


Chimpancés

viernes, 3 de mayo de 2013

Mioceno Medio (hace 16-10 Ma). La edad dorada de los Hominoidea.

Se han encontrado abundantes fósiles de hominoideos datados en el Mioceno Medio (16-10 Ma) en Asia y Europa, pero pocos en África. Sin duda, la colonización del suelo del bosque constituyó un éxito para los hominoideos que, desde África, se extendieron por Eurasia donde las condiciones ambientales les eran más favorables.
  • Entre 14-12 Ma la temperatura del planeta descendió unos 12ºC de media. Los casquetes polares se hicieron muchos más grandes y consiguientemente bajó el nivel del mar. En África las áreas boscosas dejaron paso a espacios abiertos y secos.
  • En Eurasia, el clima comienza a estar marcado por las estaciones. Disponiendo de mayor humedad que en África, los bosques se extienden por el Sur de Eurasia. Los hominoideos engrosan el esmalte dentario y robustecen las mandíbulas, colonizan el suelo de bosques y selvas y consumen semillas, tubérculos y raíces, además de frutos, hojas y yemas.
  • Las condiciones climáticas y ecológicas permiten un cambio a a dietas de frutas maduras ricas en fructosa pero con bajo contenido de vitamina C, con pérdida de la encima uricasa. La capacidad de aumentar el volumen de grasa cuando la fruta madura es abundante proporcionaría un amortiguador para la supervivencia durante la escasez.
  • En este ambiente, se fueron separando los linajes, cada vez más especializados, engrosando el esmalte dentario y robusteciendo las mandíbulas. Cuando una especie encuentra nichos ecológicos vacíos, puede especializarse para llenarlos. Este fenómeno se denomina radiación adaptativa.
Hominoideos de Eurasia occidental. Isaac Casanovas-Vilar et al. 2011.

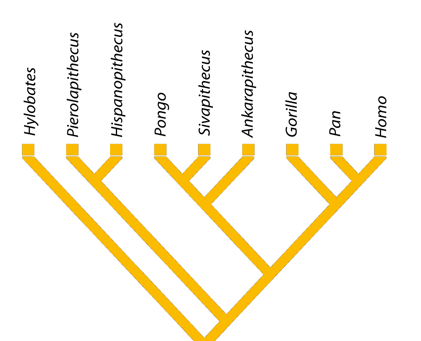
Filogenia de los homínidos, a partir del estudio que se acaba de publicar. Miriam Pérez de los Ríos. ICP
Árbol filogenético de la rama de los hominoideos a la que pertenecemos los humanos.  Miriam Pérez  de los Ríos.
En el árbol filogenético de los hominoideos, se conservan durante el Mioceno Medio las ramas correspondientes a los Proconsulidae, Afropithecidae Hylobatidae y Hominidae. Esta última rama surgida en el Mioceno Inferior se divide, a su vez, en varias subfamilias:
  • Homininae: La rama que dará origen a gorilas, chimpancés y seres humanos, con especies totalmente adaptadas al suelo, aunque conservan capacidad de trepa. No se han hallado fósiles correspondientes a este periodo.
  • Ponginae. La que dará lugar a los orangutanes (póngidos), con fósiles hallados principalmente en Asia. Según evidencias genéticas, la separación se produjo hace 14 Ma. Aunque prefieren los árboles, los orangutanes pueden caminar por el suelo apoyando las falanges proximales de las extremidades anteriores (fist walking).
    • Sivapithecus 
      • La morfología craneal es similar a la de Pongo. Cráneo con órbitas altas y redondeadas, separadas entre sí por un tabique muy estrecho. La frente se extendía verticalmente, sin reborde óseo, como en los orangutanes. Esmalte grueso, lo que sugiere una dieta de nueces, semillas y otros vegetales duros. Cuadrúpedo. Dimorfismo sexual apreciable en la talla y en los caninos.
      • La morfologío postcraneal de Sivapithecus difiere en muchos detalles de la de las especies existentes. No hay características postcraneanas sinapomórficas obvias compartidas con los hominoideos existentes, incluyendo Pongo. La morfología corresponde a un movimiento lento, pausado y arbóreo por encima de soportes combinado con un comportamiento antipronógrado frecuente.
Figure 1 Schematic geological map.
Yacimientos de hominoideos en los alrededores de Barcelona. Daniel DeMiguel, David M. Alba y Salvador Moyà-Solà, 2014.
  • Kenyapithecinae.
    • En 1999 Ward y colaboradores describieron un esqueleto parcial hallado en Kipsaramon (Muruyur, Tugen Hills, Baringo, Kenya) identificado como KNM-TH 28860. Es el más antiguo ejemplar de un hominoideo en el que se localizan rasgos avanzados tanto en el aparato masticatorio como en el locomotor. Fue datado en algo más de 15 Ma. Constituye el holotipo de Kenyapithecus wickeri. Dividía su tiempo entre el suelo y los árboles.
      • Este hallazgo refutó la hipótesis de Andrews según la cual existieron dos líneas evolutivas separadas, una de ellas con rasgos evolucionados en el aparato masticatorio y arcaicos en el locomotor y otra al contrario.
    • El pie de Kenyapithecus africanus (KNM-MB 31335; Maboko Island) presenta la morfología de plantígrado más temprana. El talón toca primero el suelo durante la locomoción terrestre, un rasgo que solo comparten los simios africanos y los humanos. KNM-MB 28397 presenta otra característica avanzada: el alargamiento, orientación plantar y extensividad lateral del tubérculo peroneal del quinto metatarsiano, el cual está orientado plantarmente. Datados en 15 Ma. Irisa D. Arney et al (2013).
  • Dryopithecinae. Con características intermedias entre los póngidos (Sivapithecus) y los kenyapithecinos.
    • En 2003 el equipo de Salvador Moyà-Solà encontró en Can Vila, Hostalets de Pierola, Barcelona, 83 huesos o fragmentos de un primate de 35 kg y alimentación a base de frutas: IPS 21350, holotipo de Pierolapithecus catalaunicus. Cara ancha y plana, largo morro con grandes caninos, dedos cortos que indican buena aptitud para trepar y correr por los árboles. Caja torácica ancha y amplia, con los omóplatos a la espalda y no a los lados. Columna vertebral más corta y rígida, especialmente en la zona lumbar. Brazos largos. Desplazamiento colgándose de las ramas (postura ortógrada); primera evidencia conocida, aunque también presenta adaptaciones primitivas para el desplazamiento cuadrúpedo por encima de las ramas. De los restos de pelvis (fragmento de ileon y pequeño fragmento del acetábulo caudal del isqueon; los más antiguos conservados de un simio) se deduce que podía caminar erguido y trepar verticalmente. Estos rasgos relativos a la forma de desplazamiento debieron evolucionar en paralelo con los que presenta la rama que dará lugar a los humanos (homoplasia); se descarta la herencia de un ancestro común. Datado en 11,9 Ma. (Sergio Almécija et al, 2009; Ashley S. Hammond et al, 2013; Marta Pina et al, 2014).
      • Pierolapithecus carece de seno frontal, y sus canales lacrimales se desarrollan hacia adelante como en los póngidos y no verticalmente como en los grandes simios africanos. Otras características como la base de la cavidad nasal –que incluye el paladar- apuntan a un parecido más directo con los driopitecinos. Por otra parte, los turbinales, láminas óseas que se desarrollan en la cavidad nasal para sustentar las partes blandas de la nariz, se desarrollan de una manera muy similar a Pongo. Todos estos datos muestran que Pierolapithecus catalaunicus presentaba un mosaico de características propias de los homínidos primitivos, así como algunas derivadas de los ponginos, que son inconsistentes con la hipótesis que Pau fuera uno de los primeros homínidos (Miriam Pérez de los Ríos, 2012).
        • Vivió en bosques de laurisilva (hojas grandes y lanceoladas, perennes).
    • Anoiapithecus
      • Anoiapithecus brevirrostris
        • Lluc, rostro parcial con mandíbula.
        • IPS 35027: fragmento de maxilar con M1–M2 derechos y P4–M2 izquierdos, datado en 12,3–12,2 Ma. Hallado en Abocador de Can Mata (Barcelona). Asignación taxonómica en estudio.Representa el fósil hominoideo más antiguo hallado en la Península Ibérica.
        • IPS 41712: fragmento de maxilar izquierdo con P3–M1, datado en 11,9 Ma.
    • Dryopithecus pesaba entre 20-30 kg, con un acusado dimorfismo sexual. Caninos desarrollados en los machos. Molares de esmalte delgado, lo que indica alimentación de frutos carnosos. Brazos más largos que las piernas y primeras y segundas falanges de los dedos de las manos extraordinariamente largas, lo que indica locomoción suspendida, similar a la de los orangutanes. Yacimientos en Vallès-Penedès, Udabno (Cáucaso) y Rudabanya (Europa Central).
      • Dryopithecus fontani. 11.9-10.5 Ma.
        • Abocador de Can Mata en els Hostalets de Pierola. Cara parcial de un individuo adulto de sexo masculino (ACM/C3-Ae; 11,9 Ma).  La morfología en algunos aspectos recuerda la de los gorilas actuales.Un canino superior de macho (ACM/C4-Ap; 11,9 Ma). Un fragmento proximal de fémur´(ACM/C3-Az; 11.9 Ma, atribuido provisionalmente a D. fontani en base a su gran tamaño. 
        • Castell de Barberà en Barberà del Vallès (ca. 11.2-10.5 Ma) dos fragmentos de falanges pollicales y una diáfisis humeral parcial. Asignación dudosa.
        • La Grive-Saint-Alban.
    • Oreopithecus habitaba la isla tosco-sarda. Entre 20-30 kg. Cráneo pequeño y globuloso. Mandíbula robusta. Maxilar corto con caninos de pequeño tamaño. Premolares con dos cúspides. Esmalte delgado, con gran número de crestas y pequeñas cúspides, lo que indica una dieta basada en hojas. Pies prensiles y brazos mucho más largos que las piernas, lo que indica capacidad de trepa y suspensión, similar a la de los orangutanes. Gabrielle A. Russo y Liza J. Shapiro (2013) han reinterpretado los restos postcraneales BA # 72 (Oreopithecus bambolii) procedentes de Baccinello, Toscana. Un estudio anterior, había encontrado evidencias de bipedación, a partir de la pelvis y la curvatura lumbar (Köhler y Moyà-Solà, 1997), pero según el neuvo estudio, la región lumbosacra no presenta adaptaciones para la bipedación. Según Sergio Amécija et al (2014) poseía mayor capacidad de manipulación que los simios no humanos existentes. Frank L’Engle Williams (2013), a partir del microdesgaste dental del ejemplar IGF 11778, propone una dieta folívora con forrajeo intermitente extractivo y/o terrestre. A partir de los isótopos de carbono y oxígeno en el esmalte de los dientes, para Nelson y Rook (2016) Oreopithecus habitaba bosques abiertos y su alimentación incluía probablemente tubérculos y vegetación acuática. Los valores de presencia de los isótopos son similares a Ardipithecus.
 BA # 72 (Oreopithecus bambolii)
    • Hispanopithecus (Alba et al, 2018).
      • Hispanopithecus laietanus (11,1-9,5 Ma) presenta características faciales y del resto del esqueleto más derivadas que los driopitecinos del Mioceno medio (Pierolapithecus, Dryopithecus y Anoiapithecus). Se trata del primer homínoideo que presenta adaptaciones para desplazarse suspendido bajo las ramas (plan corporal ortrógado), como ha mostrado el estudio del espécimen IPS18800 Jordi, a pesar de conservar aún algunas adaptaciones más primitivas para el desplazamiento cuadrúpedo arbóreo (Melissa Tallman et al, 2013).
        • Fue definido originalmente sobre la base de una mandíbula inferior y restos dentales de La Tarumba 1.
        • Restos dentales en varias localidades, aunque la muestra más grande proviene de Can Llobateres 1. Además, en este yacimiento, algunos huesos aislados.
        • Cráneo parcial de Can Llobateres 2. Esqueleto parcial de alrededor de 60 elementos.
        • Restos inéditos de la Estación Depuradora de Aguas Residuales del Ripoll, en Sabadell (EDAR).
        • Esqueleto parcial de Can Feu, Sant Quirze del Vallès. 
      • Hispanopithecus crusafonti ca 10,4-10 Ma). Especie muy discutida.
        • La mayor parte de los restos, provienen de Can Poncic 1.
        • Mandíbula parcial de Teuleria del Firal.
      • Hispanopithecus hungaricus (ca 10-9,8 Ma).
    • Según Daniel DeMiguel, David M. Alba y Salvador Moyà-Solà (2014) la dieta de Pierolapithecus se asemejaba a los consumidores de alimentos duros, Oreopithecus forrajeaba frutas blandas y otros alimentos de forma oportunista y los demás géneros carecen de análogos dietéticos existentes claros: muestran algunos grados de esclerocarpia (abrían cáscaras duras con sus dientes), con mayor claridad en Griphopithecus y Ouranopithecus (adaptado a los ambientes más abiertos y áridos) mientras que Anoiapithecus, Dryopithecus e Hispanopithecus dependen en mayor medida de frutos blandos. Por lo tanto, en contraste con la condición esclerocárpica vigente al inicio de la radiación de los homínoideos de Eurasia, en el Mioceno Tardío la dieta de frutas blandas coexistió con la de alimentos duros. A pesar de una tendencia climática hacia el enfriamiento y el aumento de la estacionalidad, se produjo una progresiva diversificación de la dieta que no incluyó la alimentación estricta con hojas.
Pierolapithecus catalaunicus. Se destacan los restos de pelvis.
Adam Van Arsdale. The Age of Apes.


Te puede interesar:

jueves, 2 de mayo de 2013

La erupción del Monte Toba no fue la causa del cuello de botella poblacional

Christine S. Lane, Ben T. Chorn, y Thomas C. Johnson han estudiado los sedimentos del lago Malawi y no han encontrado evidencias de cambio de temperatura hace 75 ka, en el momento de la erupción del Monte Toba (Sumatra), lo que implica que la erupción no impactó significativamente en el clima de África Oriental y no fue la causa del cuello de botella poblacional que se produjo en aquel momento.

La gran migración

Nuevos estudios sobre el Australopithecus sediba.


Reconstrucción del esqueleto del Australopithecus sediba (centro), en comparación con el de un humano moderno (hembra; izquierda) y el de un chimpancé (macho de Pan troglodytes; derecha). Lee R. Berger.
Lee Berger como autor principal y director del proyecto y un equipo internacional de científicos han publicado en Science nuevos estudios sobre el Australopithecus sediba.

Los estudios confirman una evolución en mosaico:
  • Rasgos primitivos.
    • Tórax superior estrecho y cónico. Esta morfología limita el balanceo de los brazos al caminar.
    • Brazos largos y simiescos y escápula adaptados a la trepa e incluso la suspensión.
    • Pie similar al del chimpancé.
  • Rasgos derivados en la línea del sapiens.
    • Curvatura de la espalda baja. Columna flexible. Mismo número de vértebras lumbares que Homo.
    • Pelvis
    • Muñeca, mano y dedos adaptados al agarre de precisión. Pudieron fabricar herramientas sin perder la capacidad de escalada.
    • Dientes. 
      • Boca parecida a la humana.
      • Caninos pequeños.
      • Aunque relacionados, son distintos a los de Australopithecus africanus en tamaño, forma y trayectoria ontogenética y esto garantiza la separación filogenética con esta especie.
      • Los dientes de A. sediba (y tambien los de A. africanus) están más relacionados con los de Homo que los dientes de los austalopitecinos del Este de África.
      • Sugieren que Australopithecus sediba no desciende de Australopithecus afarensis.
      • Cuatro de los rasgos compartidos por Au. sediba, Au. africanus y los Homo tempranos no se ven en los primeros homínidos.
  • Otros rasgos derivados
    • Caminaba con hiperpronación (con rotación hacia dentro de rodilla y cadera y con los pies ligeramente torcidos hacia dentro) y pasos cortos y rápidos, apoyando primero el borde exterior del pie en lugar del talón.

Enlace
Comunicado de prensa de la Universidad de Witwatersrand
Galería fotográfica
Vídeo de Jeremy DeSilva sobre la forma de bipedación
Comentarios de Eric Michael Johnson
Comentarios de Brian Switek