viernes, 24 de mayo de 2013

Bipedación: hipótesis de la topografía compleja.

Bipedación: Hipótesis de la Topografía Compleja frente a las hipótesis bosque-sabana.
Isabelle C. Winder, Geoffrey C.P. King, Maud Devès y Geoff N. Bailey proponen una nueva teoría sobre el origen de la bipedación.

Según ellos, los primeros homínidos vivieron en terrenos escarpados, variados tectónicamente, persiguiendo a sus presas por las laderas, usando las manos para agarrarse y saltando a dos patas para superar los desniveles.

La rama occidental del Rift Valley se formó hace unos 25 millones años. La formación de la grieta fragmentó la topografía, creando montañas, profundos valles y lagos. Esos nuevos y variados nichos podrían haber catalizado evolución de los primates y la especiación.


Hipótesis acerca de las ventajas adaptativas de la bipedación

sábado, 18 de mayo de 2013

Los chimpancés macho se aparean con hembras fijas cuando la comunidad es muy grande.

Kevin E. Langergraber, John C. Mitani, David P. Watts y Linda Vigilant han observado que chimpancés macho que viven en una comunidad excepcionalmente grande, muestran tendencia a asociarse con hembras concretas, durante largo tiempo.
Es probable que estos patrones de asociación surjan porque los individuos de ambos sexos se distribuyen por distintas zonas del territorio comunal. El efecto en la reproducción de las relaciones socio-espaciales, es tan fuerte como el del rango en las comunidades más pequeñas y probablemente no debilita ni fortalece la relación entre la dominancia masculina y el éxito reproductivo.

Chimpancés

viernes, 17 de mayo de 2013

El género Paranthropus

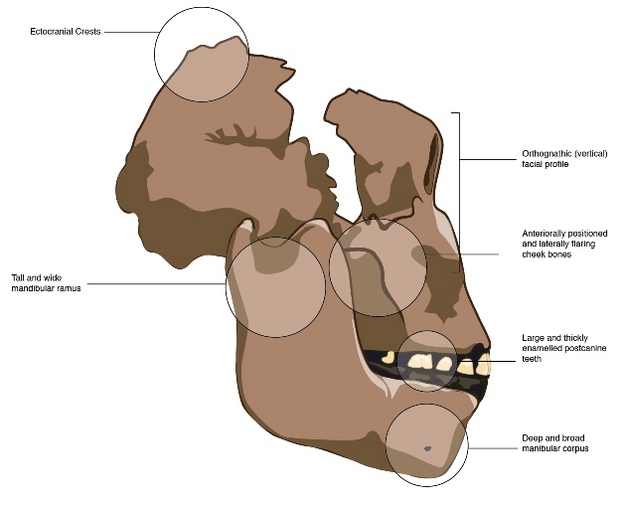
El "robusto" morfología del cráneo de <i> Paranthropus </ i>, representado por OH 5.
OH5 

El género Paranthropus fue definido en 1938 sobre los fósiles que Broom encontró en Kromdraai en 1936.

Los fósiles asignados al género han sido datados en 2,5-1 Ma.

Grine (1988) y Wood (1991) entre otros, defienden que es un grupo monofilético, mientras que Tobias (1967), Kimbel (1984) y Suwa (1994), entre otros, prefieren clasificarlos dentro de Australopithecus.

Yacimientos

  • Kromdraai, Drimolen, Sterkfontein (Sudáfrica): Paranthropus robustus Broom 1938.
  • Swartkrans (Sudáfrica): Paranthropus crassidens Broom 1949. Para la mayoría, las diferencias entre los restos de los anteriores yacimientos no justifican un taxón diferente.
  • Koobi Fora, Peninj, Chesowanja, Olduvai, Uraha, West Turkana, East Turkana (Kenia): Paranthropus boisei Leakey 1959.
  • Omo (Etiopía), West Turkana, East Turkana (Kenia): Paranthropus aetiopicus Arambourg y Coppens, 1967.
RegiónSitioFormación geológicaEdad estimada de los homínidos (millones de años)Método de dataciónLos especímenes claveEspecies presentes
África del EsteWest Turkana, KeniaNachukui2.5-2.35radiométricas, correlación de estratosKNM-WT 17000 (cráneo), KNM-WT 16005 (mandíbula)P. aethiopicus
2.3-1.6Varios especímenesP. boisei
Koobi Fora, KenyaKoobi Fora2.2-1.88radiométricas; tefroestatigrafía; radiometría de rastros de fisión de uranio, correlación de estratosKNM-ER 1500 (esqueleto parcial) y otrosP. boisei
1.88-1.65KNM-ER 406, 407, 732 (cráneos) y otrosP. boisei
1.65-1.39KNM-ER 729, 3230 (mandíbulas) y otrosP. boisei
Omo, EtiopíaShungura2.6-2.3radiométricas, correlación de estratosOmo 18-18 (mandíbula edéntula; holotipo de P. aethiopicus ), y otros, la mayoría, dientes aisladosP. aethiopicus
2.3-1.2Varios ejemplares, la mayoría dientesP. boisei
Chesowanja, KenyaChemoigut2.0-1.5Bioestratigrafía; radiométría de la capa de coberturaCH1 (cráneo parcial), otros fragmentosP. boisei 
Konso, EtiopíaKonso1,4radiométrica; tefroestatigrafía, correlación de estratosKGA 10-525 (cráneo), y otrosP. boisei 
Malema, MalawiChiwondo1,5bioestratigrafíaRC 911 (maxilar)P. boisei 
Peninj, TanzaniaHumbu1.7-1.3radiométrica; magnetoestratigrafíaPeninj mandíbulaP. boisei 
Garganta de Olduvai, TanzaniaOlduvai1.9-1.7radiométrica; bioestratigrafíaOH 5 (cráneo; holotipo de P. boisei )P. boisei 
1.7-1.2Varios especímenesP. boisei 
África del SurSwartkrans, SudáfricaMonte Christo1.8-1.5bioestratigrafía> 300 ejemplares aislados, en su mayoría restos dentales, incluyendo SK6 (holotipo de P. crassidens )P. robustus( P. crassidens)
1.5-1.0P. robustus( P. crassidens)
Kromdraai, SudáfricaMonte Christo2.0-1.5bioestratigrafía, polaridad invertidaCerca de 30 especímenes, incluyendo TM1517 (cráneo; holotipo de P. robustus )P. robustus
Sterkfontein, Sudáfrica (M5B)Monte Christo1.4-1.1magnetoestratigrafíaDos especímenes: Stw 566 y 569 StwP. robustus
Drimolen, Sudáfrica Monte Christo2.0-1.5Composición General asociación faunística; no hay fechas absoutas> 80 homínidos, incluyendo DNH 7 (cráneo casi completo) y DNH 8 (mandíbula masculina)P. robustus
Gondolin, SudáfricaEccles1.9-1.5bioestratigrafía (provisional)GDA-2: muy gran mandibular M2P . sp.
Cueva de Cooper, SudáfricaMonte Christo1.5-1.4radiométrica; bioestratigrafíaCOB 101 (cráneo parcial) y otros, sobre todo dientes, también postcranealesP. robustus
Tabla 1: El Paranthropus evidencia fósil. 

Características

  • Bipedación más afirmada que en los australopitecos. Talla algo mayor. Brazos relativamente más cortos y piernas más largas. Anatomía del pie mal conocida.
  • Mano similar a la de Homo habilis, con algunas características arcaicas como unas primeras falanges robustas y curvadas, pero el resto de los huesos indican manipulaciones precisas y de presa poderosas.
  • Diformismo sexual muy pronunciado, con valores similares a los del género Gorilla.
  • Enorme rostro cóncavo, muy alto, con mandíbula muy profunda, estructurado para una masticación potente. Los músculos masticadores proyectan hacia delante las partes periféricas del rostro. Huesos malares adelantados, ampliando la superficie de los músculos masetereos. El arco cigomático, en forma de asa redondeada, se curva hacia fuera adquiriendo un mayor diámetro y posibilitando unos músculos temporales de gran tamaño. Cresta sagital para la inserción de poderosos músculos temporales, continuando en una cresta occipital nucal. Los pómulos avanzan hasta ocultar el orificio nasal, que está alojado en una depresión. No hay umbral entre la base nasal y el clivus nasoalveolar. Maxilar en posición más posterior que en el resto de los homínidos, retrasando con ello la zona de los premolares. Mandíbulas muy anchas y gruesas.
  • Incisivos y caninos reducidos. Premolares y molares muy grandes y robustos cubiertos de esmalte muy grueso. 
  • Cerebro desarrollado con 550 cc por término medio, que aumenta un 25% en un millón y medio de años. Lóbulos temporales y frontales más desarrollados que en los primeros Homo. El desarrollo de las áreas parietales empuja el cerebelo hacia delante, al igual que en Homo (homoplasia). Vena meníngea media menos densa que en los australopitecos. El drenaje sanguíneo se efectúa principalmente por la vena occipital.
    • P. aethiopicus: 410 cc.
    • P. boisei: 400-545 cc.
    • P. robustus 533 cc.

Modos de vida

Los parántropos surgen cuando se desarrollan las zonas semiáridas de campo abierto (marchadores) y se extinguen los Australopithecus que son arborícolas. Conviven con herbívoros, carnívoros y otros mamíferos. 
Aunque omnívoros como los póngidos y los Australopithecus son fundamentalmente vegetarianos en un 80% de su dieta. El aparato masticatorio, por su potencia, sugiere una dieta vegetariana dura (plantas de hoja y tallo duro, frutos secos), pero salvo en el caso del P.boisei, el análisis de isótopos y de microdesgaste de los dientes hallados no revela una dieta de alimentos duros. Es posible que los parántropos solo recurriesen a los alimentos duros en situaciones de estrés alimenticio o que consumiesen cangrejos y otros mariscos (Martínez et al, 2016; Jordi Marcé-Nogué, 2020).
Balolia, Soligo y Wood (2017), apuntan que la cresta sagital puede haber sido objeto de selección sexual.
De acuerdo con el esqueleto de sus manos pudieron fabricar instrumentos líticos y de acuerdo con hallazgos en niveles estratigráficos similares parece que los construyeron, quizá sólo para machacar huesos. Manejaban palos de cavar.

Taxonomía y filogenia

Rama colateral procedente de la separación (4-5 Ma) desde un antepasado común (¿Ardipithecus ramidus? ¿Orrorin tugenensis?) que se extingue hace 1,5 Ma. Conviven con los Homo habilis durante 1,5 Ma.

Estos son los principales problemas taxonómicos y filogenéticos que afectan al género.
  1. ¿Paranthropus es monfilético?
    • Para Walker y colaboradores la presencia de rasgos comunes en ejemplares robustos de Sudáfrica y África del Este serían homoplasias y por tanto los australopitecinos robustos formarían dos clados, dos linajes separados:
      • La sucesión P. aethiopicus-P. boisei 
      • P. robustus 
    • Para Skelton y McHenry, hay relación filogenética entre P.boisei y P. robustus, con exclusión de P. aethiopicus.
      • Esta teoría tiene pendiente explicar cómo el menos derivado (es decir, menos robusto P. robustus ha evolucionado a partir del más antiguo y derivado P. boisei.
    • Estudios a favor de la monofilia:
      • Wood, 1988.
      • Corruccini, 1994.
      • Strait et al, 1997.
      • Strait y Grine, 2004.
      • Kimbel et al, 2004.
      • Villmoare et al, 2014.
    • Razones para reexaminar la monofilia de Paranthropus.
      • El descubrimiento de KNM-WT 17000 y otros especímenes, con rasgos en mosaico de   Australopithecus afarensis y Paranthropus.
      • Los hallazgos se concentran en unas pocas regiones del cuerpo y puede que no reflejen las verdaderas relaciones evolucionarias.
      • La mayor parte de las características que relacionan a los parántropos entre sí, se relacionan con la masticación y son interdependientes. Podrían ser resultado de una homoplasia, un proceso de evolución convergente. Por ejemplo, la megadontia en una cara relativamente pequeña se da también en Australopithecus garhi.
    • Se han realizado estudios para probar la monofilia de Paranthropus, sin resultados claros:
      • Wood, 1988.
      • Turner y Wood, 1993.
  2. ¿P. robustus y P. boisei pueden agruparse en la misma especie?
    • El  hallazgo en 1997 en Konso (Etiopía) del cráneo KGA 10-525 hace pensar que rasgos considerados fundamentales pueden ser en realidad polimorfismos. El P. boisei de Olduvai sería un espécimen extremo mientras los descubiertos en Turkana y Konso tendrían una morfología intermedia entre los de Olduvai y los P. robustus sudafricanos. Además, descubrimientos recientes en el sur de África (Drimolen y Gondolin) parecen llenar la separación entre robustus y boisei.
    • Sin embargo, Wood y Lieberman (2001) y Constantino y Wood (2004) han confirmado las diferencias entre los hallazgos del Este de África y los del Sur.
      • Wood y Constantino consideran que las similitudes con Australopithecus africanus son un caso notable de homoplasia con ambos linajes tendiendo hacia la hipertrofia morfológica masticatoria y megadoncia extrema de los postcaninos, y además en ausencia de similitudes en la dieta.
  3. ¿P. aethiopicus y P. boisei pueden agruparse en la misma especie?
    • Dos estudios han analizado este problema en detalle: 
      • Suwa (1988) encontró una autapomorfia en P. boisei: coronas de los premolares mandibulares con talónido particularmente largo y elaborado.
      • Wood et al (1994) localizaron más diferencias en la mandíbula y en la dentición mandibular, como la altura de la sínfisis mandibular, el corpus mandibular en las áreas de las coronas de M1 y P4.
    • P. aethiopicus es más prognato, con los incisivos más largos, la base craneal menos flexionada y los postcaninos son más pequeños.
    • La naturaleza de las diferencias es consistente con el concepto de cronoespecie.
  4. ¿Hay relación filogenética con Australopithecus afarensis?
    • Kimbel et al (2004) y Rak y Kimbel (2006) no encontraron evidencia de relaciones filéticas directas.
  5. ¿Hay relación filogenética con Australopithecus africanus?
    • No es posible porque africanus se extiende hasta hace 2,3 Ma mientras que aethiopicus aparece hace 2,6 Ma.
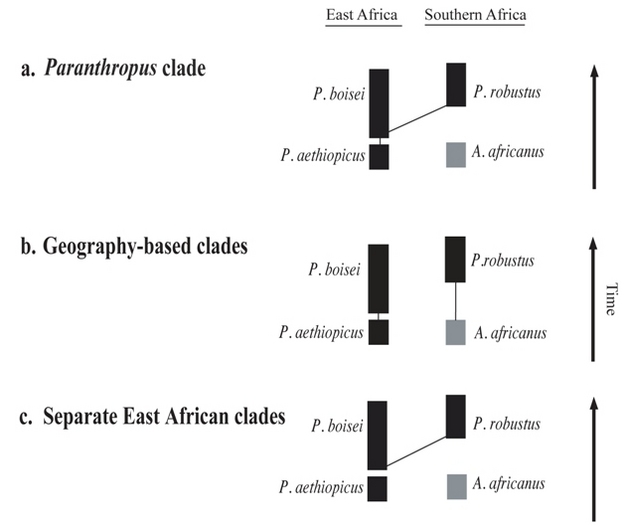
Proposed phylogenies for the “robust” hominins.
(a) los "robustos" homínidos de África oriental y meridional forman un clado monofilético y por lo tanto pueden ser agrupadas en el género Paranthropus (Grine)
(b) Los homínidos "robustos" se originó de forma independiente en el este y sur de África (Walker)
(c), propuesto originalmente por Skelton y McHenry. Hay  relación filogenética entre P.boisei y P. robustus,  con exclusión de P. aethiopicus .
Paranthropus desaparece del registro fósil en algún momento entre 1,4 y 0,9 Ma. Las causas de su extinción pudieron haber sido:
  • Se habían vuelto demasiado especializados para hacer frente a las cambiantes condiciones ambientales.
  • La competencia con los Homo.


Te puede interesar:

Resultados de las excavaciones en Hoedjiespunt 1 (MSA)

La imagen a tamano completo (198 K)
Materias primas utilizadas en Hoedjiespunt 1. Quarzo (Q), silcreta (S), quarzo pórfido (QP), granito (GR), grauvaca (GW) and chert (CH).
Manuel Will, John E. Parkington, Andrew W. Kandel y Nicholas J. Conard han publicado los resultados de nuevas excavaciones en el yacimiento al aire libre de Hoedjiespunt 1 (HDP1) en la costa occidental de Sudáfrica, correspondiente a la MSA, y del estudio detallado de los conjuntos líticos.

HDP1 consta de tres fases de ocupación, todas ellas con abundantes artefactos líticos, restos de mariscos y fauna terrestre, cáscaras de huevos de avestruz y pedazos de ocre.

Las principales características de los conjuntos líticos se mantienen constantes durante todo el uso del sitio. Domina el cuarzo sobre la silcreta y otras materias primas. Las lascas denticuladas representan el tipo de herramienta más frecuente. 

Los conjuntos líticos documentan un modelo robusto del uso de la tierra que los autores interpretan como una adaptación estable de los humanos modernos a los paisajes costeros ya en MIS 5e.


Middle Stone Age (MSA o Modo 3)

jueves, 16 de mayo de 2013

Paranthropus aethiopicus

Paranthropus aethiopicus, Arambourg y Coppens, 1968.

2,7-2,3 Ma.
Yacimientos:

  • Formación Shungura, Río Omo, Etiopía.
  • Formación Nachukui, West Turkana, Kenya.
  • Ndolanya Beds, Laetoli, Tanzania.

Holotipo.

Omo 18-1967-18. Mandíbula fragmentaria de 2,7 Ma, hallada por Camille Arambourg e Yves Coppens en el Miembro C de la Formación Shungura, Etiopía.

KNM-WT 17000. Paranthropus aethiopicus.

Paratipos.

En la Formación Nachakui, cuenca del Lomekwi, al Oeste del lago Turkana, Alan Walker y sus colaboradores del equipo de Richard Leakey encontraron en 1985 fósil más completo de esta especie, KNM-WT 17000 (Black Skull) de 2,5 Ma, que daba impresión de hiper-robusto. Sin dientes. Es el único cráneo conocido de esta especie. El color oscuro se debe a la presencia de minerales de manganeso.

  • Cráneo reestructurado para sostener un aparato masticatorio masivo, con un esqueleto facial muy ancho y gran prognatismo. Arcos cigomáticos abiertos para dejar paso a los músculos temporales. Plano subnasal llano. Transición suave entre la superficie subnasal y el fondo de la cavidad nasal, con margen inferior de la apertura nasal indistinto; inserción anterior vomeral y espina nasal anterior fusionadas dentro de la cavidad nasal; paladar espeso verticalmente; superficie facial del cigomático inclinada hacia delante, lo que deja la región nasal en un hueco facial central; calvario bajo; escama frontal con el trígono frontal delimitado por unas fuertes convergentes líneas temporales; elemento timpánico inclinado verticalmente, con cresta petrosa diferenciada; elemento petroso alineado coronalmente; dentición poscanina masiva.
  • Capacidad craneal muy baja (410 cc.)
  • Cresta sagital enorme, la más grande de todos los homínidos, para facilitar el anclaje de unos poderosos músculos temporales, resultado de la yuxtaposición de músculos temporales alargados a una caja cerebral muy pequeña, lo que puede que no sea típico de la especie.
Otros rasgos de la especie:
  • Molares enormes.
  • Mandíbula de gran tamaño.
Otros fósiles principales:
  • West Turkana
    • KNM-WT 16005 (1985, mandíbula parcial)
  • Omo (hallados entre 1902-1976).
    • Omo 44-1970-2466. Mandíbula.
    • Omo 57-4-1968-41. Mandíbula.
    • Omo 860-2 Mandíbula.
    • Omo L55-s-33. Mandíbula.
    • Omo L338-y-6. Cráneo.
    • Omo; 20 dientes poscaninos inferiores, algunos en las mandíbulas señaladas.
  • Ndolanya Beds, Laetoli.
    • EP 1500/01. Maxilar sin dientes.

Lista completa de hallazgos craneodentales (Bernard Wood y Paul Constantino, 2007).

Omo F22-1a. 2.33–2.36 Ma. M2 mandibular derecho.
Omo F22-1b. 2.33–2.36 Ma. M3 mandibular izquierdo.
Omo L10-21. 2.36–2.40 Ma. Fragmento M3 mandibular derecho.
Omo L26-59. 2.36–2.40 Ma. M2 o M3 maxilar izquierdo.
Omo L28-58. 2.33–2.36 Ma. M2 o M1 maxilar derecho.
Omo L28-126. 2.33–2.36 Ma. Corona premoral izquierdo.
Omo L50-2. 2.40–2.52 Ma. M2 o M1 maxilar izquierdo.
Omo L51-79. 2.52–2.58 Ma. P4 mandibular derecho.
Omo L55-33. 2.58–2.75 Ma. Fragmento mandibular izquierdo.
Omo L62-17. 2.58–2.75 Ma. M2 mandibular derecho.
Omo L64-2. 2.40–2.52 Ma. P4 deciduo mandibular izquierdo.
Omo L157-35. 2.33–2.36 Ma. M2 mandibular izquierdo.
Omo L209-17. 2.33–2.36 Ma. Fragmento M2 mandibular derecho.
Omo L209-18. 2.33–2.36 Ma. Fragmento M mandibular izquierdo.
Omo L238-35. 2.33–2.36 Ma. M2 maxilar derecho.
Omo L296-1. 2.40–2.52 Ma. M3 mandibular derecho.
Omo L338X-32. 2.36–2.40 Ma. M3 maxilar izquierdo.
Omo L338X-33. 2.36–2.40 Ma. Fragmento P4 maxilar derecho.
Omo L338X-34. 2.36–2.40 Ma. M1 o M2 maxilar izquierdo.
Omo L338X-35. 2.36–2.40 Ma. P3 maxilar derecho.
Omo L338X-39. 2.36–2.40 Ma. Corona M3 mandibular izquierdo.
Omo L338X-40. 2.36–2.40 Ma. P4 mandibular izquierdo.
Omo L338y-6. 2.36–2.40 Ma. Porción parieto-occipital del cráneo.
Omo L338y-89. 2.36–2.40 Ma. Fragmento P3 maxilar izquierdo.
Omo L398-14. 2.36 Ma. dm1, dm2 o M1 mandibular derecho.
Omo L398-120. 2.36 Ma. P3 mandibular derecho.
Omo L398-264. 2.36 Ma. Fragmento M3 mandibular derecho.
Omo L398-266. 2.36 Ma. M3 mandibular derecho.
Omo L398-630. 2.36 Ma. M3 mandibular derecho.
Omo L398-847. 2.36 Ma. Fragmento M3 mandibular izquierdo.
Omo L398-1223. 2.36 Ma. Fragmento P4 mandibular derecho.
Omo L398-2608. 2.36 Ma. Fragmento M3 maxilar derecho.
Omo L420-15. 2.33–2.36 Ma. P4 mandibular izquierdo.
Omo L465-111. 2.33–2.36 Ma. Fragmento P3 mandibular izquierdo.
Omo L465-112. 2.33–2.36 Ma. Fragmento M2 mandibular izquierdo.
Omo L860-2. 2.33–2.36 Ma. Fragmento de mandíbula.
Omo 18-18. 2.58–2.75 Ma. Mandíbula sin dientes.
Omo 18-31. 2.6? Ma. P3 mandibular.
Omo 33-9. 2.36 Ma. M3 mandibular derecho.
Omo 33-62. 2.36 Ma. Fragmento premolar mandibular o M3 maxilar derecho.
Omo 33-63. 2.36 Ma. M1 maxilar derecho.
Omo 33-65. 2.36 Ma. M3 germinal mandibular izquierdo.
Omo 33-506. 2.36 Ma. P3 maxilar derecho.
Omo 33-507. 2.36 Ma. P4 mandibular derecho o M3 maxilar izquierdo.
Omo 33-508. 2.36 Ma. P4 mandibular izquierdo.
Omo 33-6172. 2.36 Ma. M3 mandibular derecho.
Omo 44-1410. 2.36–2.40 Ma. Fragmento P4 maxilar derecho.
Omo 44-2466. 2.36–2.40 Ma. Fragmento izquierdo de mandíbula.
Omo 57-41. 2.38 Ma. Mandíbula.
Omo 57-42. 2.36–2.40 Ma. M1 mandibular.
Omo 57-147. 2.36–2.40 Ma. Fragmento P4 mandibular izquierdo o M3 maxilar.
Omo 57-148. 2.36–2.40 Ma. Fragmento premolar mandibular derecho.
Omo 76r-11. 2.33–2.36 Ma. Fragmento M3 mandibular derecho.
Omo 84-100. 2.60 Ma. M3 mandibular derecho.
KNM-WT 16005. 2.36–2.46 Ma. Mandíbula parcial.
KNM-WT 17000. 2.47–2.57 Ma. Cráneo y endocasto.
EP 1500/01. 2.5–2.7 Ma. Maxilar sin dientes.

Relaciones filogenéticas

Algunas características del cráneo recuerdan a Australopithecus afarensis: Base del cráneo plana, articulación de la mandíbula baja, rostro prominente y cerebro pequeño.
Paranthropus boisei y Paranthropus robustus muestran una base del cráneo angulosa, una articulación de la mandíbula profunda, una cara plana y un cerebro algo mayor (500 a 545 cc). Estas características son compartidas por los primeros Homo. Estos parecidos se han atribuido a evolución paralela.

Actualmente se acepta en general que el linaje robusto del Este de África (aethiopicus -> boisei) procede de Australopithecus afarensis.

En la década de 1990, Randall Skelton y Henry McHenry sugirieron que Paranthropus y Homo habían heredado sus rasgos compartidos de un antepasado común, tal vez de Australopithecus africanus. En su opinión, P. aethiopicus era demasiado primitivo para ser el ancestro de Homo y las semejanzas entre ellos se debían a una evolución paralela. También se debían a evolución paralela las semejanzas con P. boisei y P. robustus, con dietas y apartados masticatorios similares. P. aetiopicus formaría una rama sin descendencia de Australopithecus y debería ser llamado Australopithecus aethiopicus.

Adam van Arsdale: KNM-WT 17000


Te puede interesar:

Nuevo estudio sobre las patologías dentales de los neandertales de El Sidrón

La imagen de un tamano completo (99 K)
Hemimandíbula del Individuo 2 de El Sidrón.

MC Dean, A. Rosas, A. Estalrrich, A. García-Tabernero, R. Huguet, C. Lalueza-Fox, M. Bastir y M. de la Rasilla han estudiado dos especímenes neandertales de El Sidrón con indicios de caninos deciduos retenidos en la mandíbula izquierda.
Estos individuos comparten el mismo ADN-mt, lo que indica que están relacionados vía materna y sugiere un base heredable para esta anomalía.

Yacimientos neandertales

Evolución temprana del oído medio

sn-ossicles.jpg
Huesecillos del oído medio de homínidos tempranos.
Rolf M. Quam, Darryl J. de Ruiter, Melchiorre Masali, Juan-Luis Arsuaga, Ignacio Martínez y Jacopo Cecchi Moggi, han estudiado los huesecillos del oído medio (martillo, yunque y estribo) de dos ejemplares de homínidos antiguos de África del Sur:
  • Australopithecus africanus (3,3-2,1 Ma). Restos incompletos.
  • Paranthropus robustus datado en 1,8 Ma.
En ambas muestras, el equipo descubrió que el martillo es similar al humano y más pequeño que en los simios. Su tamaño implica un tímpano pequeño y esta característica, al igual que la bipedación, podría ser definitoria de los homínidos. Un tímpano pequeño podría ser una señal temprana de la alta sensibilidad a las frecuencias acústicas de gama media de 2 a 4 kilohercios críticas para el lenguaje hablado.
Por el contrario, el yunque y el estribo son más similares a los de los simios, de lo que se infieren diferentes capacidades auditivas en los primeros homínidos y en los últimos.

Filogénesis del oído