PEI Shuwen et al, han comunicado el hallazgo de cinco dientes de homínidos y un gran número de fósiles de mamíferos (39 especies) en la Cueva Fuyan (Houbeishan), Tangbei, Lefutang, Daoxian, Hunan (China) durante una excavación llevada a cabo en septiembre y octubre de 2011.
Las características morfológicas generales de los cinco dientes de homínidos los asocian con Homo sapiens, y su tamaño cae dentro del rango de variación de los humanos modernos chinos.
Los sedimentos y la fauna asociada permiten avanzar que la ocupación homínida de la cueva se produjo a finales del Pleistoceno Superior.
Comparación de la quinta (C5), sexta (C6) y séptima (C7) cervicales del neandertal de La Chapelle-aux-Saints (LC) con un humano moderno de la muestra europea con medidas cercanas a la media moderna. Destaca una apófisis espinosa más larga y más horizontalmente orientada en LC y un mayor diámetro transversal superior, que está relacionado con un canal vertebral mediolateralmente más amplio.
Los resultados de este estudio indican que hay diferencias métricas y morfológicas significativas entre los neandertales y los humanos modernos en todas las vértebras cervicales. Las vértebras cervicales de los neandertales son más anchas mediolateralmente y más largas dorsoventralmente, en parte debido a apófisis espinosas más largas y orientadas más horizontalmente. Esto sugiere que el cuello de los Neandertales era más estable tanto en el plano medio-sagital como en el plano coronal.
La nueva datación, de 45-50ka, de diferentes ejemplares, descarta la coincidencia con Homo sapiens en estos lugares y pone en duda anteriores dataciones que asignaban 36 ka a estos reductos en la Península Ibérica. El protoauriñaciense aparece en estos lugares con dataciones de 42 ka.
También pone en duda la asignación a neandertales de herramientas y adornos en base a la datación.
Ash Parton, Andrew R. Farrant, Melanie J. Leng, Jean-Luc Schwenninger, Jeffrey I. Rose, Hans-Peter Uerpmann y Adrian G. Parker han estudiado los depósitos lacustres del sudeste de Arabia, formados en el inicio de MIS 3 (ca. 61-58 ka). En este momento, la incursión de las lluvias monzónicas en el interior de Arabia activa una red de canales asociados a un sistema de abanicos aluviales a lo largo de las laderas occidentales de las montañas de Hajar, y forma un lago.
Estos resultados están en contraste con muchos otros registros paleoclimáticos de Arabia, lo que sugiere que durante MIS 3, la posición latitudinal del monzón fue sustancialmente más al sur y no penetraba en la península y cuestiona la idea de que el clima de Arabia tras MIS 5 era demasiado duro para permitir la expansión de comunidades indígenas. El aumento de la humedad en el interior de Arabia durante el MIS 3 sería fundamental para el éxito de las primeras comunidades humanas en la región.
Los gorilas (género Gorilla) son primates herbívoros que habitan los bosques de África central. Es el más grande de los primates vivos. Su ADN es 97%–98% idéntico al humano, siendo el más cercano al humano después de dos especies de chimpancés.
El físico y misionero americano Thomas Staughton Savage fue el primero en describir el gorila occidental (lo llamó Troglodytes gorilla, en recuerdo de los gorillai del cartaginés Hannon) en 1847 a partir de especímenes obtenidos en Liberia. El nombre es derivado de la palabra griega gorillai (una «tribu de mujeres peludas») descrita por Hannón el Navegante. Antes, el corsario Battell le había dado el nombre de Pongo, hoy utilizado para el género al que pertenece el orangután.
Nuestros conocimientos se basan en los estudios de Dianey Fossey, detallados y de larga duración, del gorila de montaña, en el Karisoke Research Center de Ruanda.
Los gorilas, aunque adaptados a la vida arborícola, prefieren desplazarse por el suelo en cuatro patas, apoyando las extremidades superiores en las caras dorsales de las segundas falanges (knucle walking). Sus extremidades anteriores son más alargadas que las posteriores (aunque relativamente más proporcionadas que en los gibones o los orangutanes) y se asemejan a brazos, aunque son utilizadas también como punto de apoyo al caminar. Los machos miden entre 1,65 y 1,75 m de altura, y pesan entre 140 y 200 kg, pero pueden alcanzar dos metros de altura y 250 kg. de peso. Las hembras pesan aproximadamente la mitad que los machos. Un gorila obeso en cautividad ha alcanzado los 270 kg. Los machos se distinguen por la potencia de sus caninos y por una cresta sagital asociada a unos músculos temporales potentes que confieren gran fuerza al cierre de las mandíbulas. La estructura facial del gorila se conoce como de «mandíbula protuberante» pues la mandíbula es mucho mayor que el maxilar.
La gestación dura aproximadamente 250 días y pasan 3 a 6 años entre nacimientos. Las madres tienen una cría en cada embarazo, de unos dos kilogramos. Es posible que sean dos pero en la naturaleza usualmente sólo uno sobrevive. Las crías viven con sus madres 3 o 4 años. Las hembras maduran sobre los 10–12 años (antes en cautividad);los machos entre los 11 y los 13. La esperanza de vida es de 30 a 50 años. El Massa del zoológico de Filadelfia tiene el récord de longevidad muriendo a los 54 años. Normalmente las madres sólo tienen un hijo cada cinco o seis años. La menstruación es cada 28 días y son capaces de procrear durante todo el año.
Los gorilas son vegetarianos, consumen principalmente frutas, hojas, yemas, brotes, si bien pueden llegar a consumir algunos insectos, lo que representa solo del 1 al 2 por ciento de su dieta. Para alimentarse, recorren al día grandes distancias. Los gorilas de montaña ingieren grandes cantidades de una variedad de hierbas, enredaderas, matorrales y bambú; comen poca fruta, escasa en su hábitat.
Todos los gorilas comparten el mismo tipo de sangre (B) y, como los humanos, cada gorila tiene huellas digitales únicas que lo identifican.
En cautividad, es común la utilización de herramientas. También se han registrado algunos casos en sus ambientes naturales, relacionados con la superación de los obstáculos del terreno, pero no con la obtención de alimentos (Cyril C. Grueter et al, 2013). Jean-Felix Kinani y Dawn Zimmerman (2014) han comunicado que el 14 de mayo de 2013 una hembra juvenil salvaje, habituada a los humanos, de gorila de montaña Gorilla beringei beringei del Volcanoes National Park, Rwanda, fue observada utilizando una herramienta para conseguir comida.
Esta es la clasificación que reúne mayor consenso:
Gorila occidental (Gorilla gorilla Savage y Wyman 1847).
Gorila occidental de las tierras bajas (Gorilla gorilla gorilla Savage y Wiyman 1847). Habita en zonas de bosques, diferentes tipos, desde Camerún hasta la República Democrática del Congo. Desde el nivel del mar hasta 800 metros de elevación. Al oeste de la distribución. Esta subespecie es de pequeño tamaño comparada con las del Gorila Oriental, peso promedio de los machos adultos es de unos 140 kg.
Kusu. Gorilla gorilla gorilla del Centro de Investigación Mondika.
Gorila del río Cross (Gorilla gorilla diehli Matschie 1904). Habita en zonas de bosques en la región fronteriza entre Camerún y Nigeria; en el bosque de Cross River. Es aun más pequeño que el Gorila Occidental de Tierras Bajas.
Gorila oriental (Gorilla beringei). Presenta una fusión entre los córtex auditivo y somatosensorial, muy rara en otros primates, quizá consecuencia aleatoria de un cuello de botella poblacional (Sarah K. Barks et al, 2013).
Gorila de montaña (Gorilla beringei beringei Matschie 1903). Habita en los montes Virunga y en el bosque Buindi, al suroeste de Uganda, noroeste de Ruanda y noreste de la República Democrática del Congo. Desde los 1.300 hasta los 3.100 metros de elevación. Al este de la distribución. Son de tamaño intermedio. El pelaje es negro y largo.
La sociedad del gorila de montaña se considera igualitaria, pero el grado de sociabilidad varía considerablemente. El número de individuos con los que un gorila interactúa regularmente (centralidad social) se explica principalmente por la edad y el sexo, el número de machos y hembras y el número de individuos emparentados y alcanza un valor asintótico de alrededor de diez individuos, por lo que los grupos mayores exhiben una estructura modular. Los gorilas experimentan cambios bruscos en la centralidad social aproximadamente un año después del destete y otra vez alrededor de los diez años. Las gorilas hembras mantienen su centralidad social durante periodos prolongados de tiempo (Damien Caillaud et al, 2013).
En la relación macho-inmaduro es más relevante el rango del macho que la paternidad (Rosenbaum et al, 2015).
Gorila oriental de las tierras bajas o de Grauer (Gorilla beringei graueri Matschie 1914). Habita en los bosques al este de la República Democrática del Congo hasta el oeste del lago Tanganika. Desde los 800 hasta 2400 metros de elevación. Al centro de la distribución. Es la subespecie de tamaño mayor, peso promedio de los machos adultos es de unos 164 kg. El pelaje es negro, no muy largo.
Gorilla beringei graueri. Kahuzi-Biega National Park.(Crédito: ICCN)
Se ha propuesto una tercera subespecie de gorila oriental, la cual no ha recibido una denominación latina completa, es la población de gorila de montaña de Bwindi, llamado a veces el Gorila de Indi.
Según Matthew W. Tocheri et al (2016) en la dos especies de gorilas orientales, especialmente en los gorilas de Grauer, están presentes dos raros rasgos morfológicos ausentes en los gorilas occidentales:
En el pie, una forma de coalición tarsal que se produce entre el navicular y cuneiforme intermedio.
En la mano, la ausencia de una unión entre el trapecio y segundo metacarpiano.
La explicación más parsimoniosa, es que después de la divergencia con los gorilas occidentales, se produjeron uno o más graves eventos de cuello de botella. Por otra parte, las frecuencias más altas de estos rasgos en los gorilas de Grauer ponen de relieve la posibilidad de que este linaje sea el resultado de un efecto fundador relativamente reciente.
Las evidencias paleoambientales, geológicas, y biogeográficas apoyan la hipótesis de que un pequeño grupo de gorilas orientales se dispersó hacia el oeste de los Virunga, en las tierras altas al norte del lago Kivu, inmediatamente antes o inmediatamente después del intervalo de Younger Dryas. Los autores proponen que a medida que los bosques de las tierras bajas de África Central se expandieron rápidamente durante el Holoceno Temprano, se conectaron con los bosques de altura en expansión a lo largo de la Falla Albertina, lo que permitió esta dispersión. Las poblaciones descendientes expandieron significativamente su alcance y su tamaño en relación con los gorilas de las montañas Virunga, y de Bwindi.
Las estimaciones basadas en los genotipos autosómicos sugieren que la división entre los gorilas de montaña y los gorilas Grauer sucedió hace unos 10 ka, con una división ulterior entre las poblaciones de gorilas de montaña de Virunga y Bwindi hace ca 5 ka (Roy et al, 2014).
Kimberly F. McManus et al (2015) han analizado el genoma de 14 Gorilla gorilla gorilla, 2 Gorilla beringei graueri y 1 Gorilla gorilla diehli.
Los antepasados de Gorilla gorilla y Gorilla beringei divergieron de un ancestro común hace 261 ka.
La divergencia entre Gorilla gorilla gorilla y Gorilla gorilla diehli sucedió hace ca 68 ka
La población ancestral de Gorilla gorilla gorilla aumentó ~ 1,4 veces ca 970 ka y se redujo hace ca 23 ka, posiblemente al reducirse de forma importante los bosques ecuatoriales africanos durante el Último Máximo Glacial.
En Gorilla gorilla gorilla, los genes asociados con el gusto, la secreción pancreática y la saliva, el transporte transmembranoso de iones de sodio y la función del músculo cardíaco han experimentado selección positiva.
El hipocampo y el cerebelo de G. gorilla son significativamente mayores que los de G. beringei. Estas diferencias anatómicas pueden estar relacionadas con adaptaciones ecológicas divergentes: G. gorilla se involucra más en la locomoción arbórea y por lo tanto es más dependiente de los circuitos del cerebelo. Además, tiende a comer más frutas y su área de distribución es mayor y por lo tanto podría ser más dependiente de las funciones de mapeo espacial del hipocampo (Sarah K. Barks et al, 2014).
Un espalda plateada es un gorila macho adulto, usualmente mayor de 12 años y llamado así por la distintiva mancha de pelo plateado en su espalda. Un espalda plateada tiene caninos largos que nacen con la madurez. Los espalda negra son machos sexualmente activos de hasta 11 años de edad. Los gorilas son polígamos y se les ha llegado a ver apareándose cara a cara.
Los espalda plateada son fuertes y dominantes líderes de grupo. Cada uno domina un grupo de 5 a 30 gorilas y es su centro de atención, tomando todas las decisiones, mediando en conflictos, decidiendo los movimientos del grupo, llevando a los demás a sitios donde alimentarse y tomando la responsabilidad de la seguridad y bienestar del grupo. Es el único que se aparea con todas las hembras. Es muy tolerante con sus propias crías.
Los machos comienzan lentamente a abandonar sus grupos cuando cumplen 11 años, viajan solos o en grupo con otros machos de 2 a 5 años antes de ser capaces de atraer hembras y formar un nuevo grupo para empezar a criar. Mientras que las crías de gorila permanecen con su madre durante 3 o 4 años, los espalda plateada cuidan de los huérfanos aunque nunca hasta el extremo de cargarlos.
Si es desafiado por un macho más joven o un forastero, un espalda plateada gritará, se golpeará el pecho, romperá ramas, enseñará los dientes y entonces cargará hacia delante. Algunas veces un joven macho puede tomar el liderazgo de un macho adulto. Si el líder muere por enfermedad, accidente, luchando o por furtivos, el grupo se dividirá, y los animales se irán en busca de un nuevo líder. Muy ocasionalmente, un grupo puede ser recuperado en su totalidad por otro líder. Hay un alto riesgo de que el nuevo líder mate a las crías del antiguo líder muerto.
El gorila es de hábitos diurnos y terrestres Pasa la mayor parte del día comiendo y descansando. Tanto los machos como las hembras preparan un “nido” o cama donde duermen. Un nuevo nido es construido cada tarde en las ramas no muy altas o en la tierra, el macho principal normalmente prepara su cama en el suelo.
No es una especie territorial (pero Morrison et al, 2020, para el gorila occidental). Cuando dos grupos se encuentran es usual que cada grupo continúe con sus actividades sin ninguna demostración de agresión entre los machos dominantes. Cada grupo emplea un área de acción de 200 a 5.000 hectáreas.
Los gorilas son muy cercanos a los humanos y están considerados como altamente inteligentes. Roberta Salmi, Kurt Hammerschmidt y Diane M. Doran-Sheehy (2013) y Schaller y Fossey han registrado las llamadas de los gorilas occidentales de las tierras bajas salvajes (Gorilla gorilla gorilla) y los gorilas de montaña respectivamente. Aunque la producción vocal está muy limitada por la morfología y la filogenia, las diferentes condiciones sociales y ecológicas pueden producir diferencias en el uso y la función de las llamadas, incluso entre dos subespecies estrechamente relacionadas.
Luef, Breuer y Pika (2016) han estudiado las llamadas asociadas a la alimentación en Gorilla gorilla gorilla. Las llamadas sólo se producen durante el consumo de alimentos específicos y normalmente corren a cargo de un sólo un individuo, principalmente un macho adulto, si bien ciertos tipos de alimentos provocan la llamada simultánea de dos o más individuos.
Unos pocos individuos en cautividad, como Koko han aprendido un lenguaje de signos simplificado e incluso la coordinación de la respiración, la laringe, la lengua y los labios para la articulación (Perlman y Clark, 2015).
Los gorilas son conocidos por usar herramientas en estado salvaje.
MH1 (Karabo). Australopithecus sediba. Lee Berger, University of Witwatersrand.
Cráneo de Australopithecus sediba. Reconstrucción por Peter Schmid, foto de Lee R. Berger.
Australopithecus sediba. Recreación de John Gurche.
Australopithecus sediba, Berger et al 2010
Fue hallado por Matthew Berger, hijo deLee R. Berger,de la universidad de
Witwatersrand, Johannesburg, Sudáfrica, el 15 de agosto de 2008 en Malapa,
Sudáfrica, a 15 km. de Sterkfontein, Swartkrans, y Kromdraai.
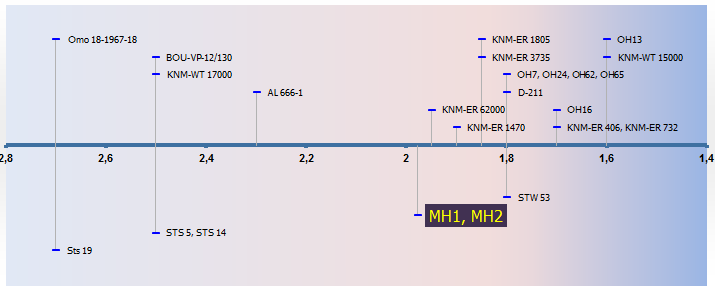
El yacimiento de Malapa se encuentra 15 km al nordeste de Sterkfontein. Los restos de Australopithecus sediba (MH1 y MH2), aparecieron al excavar un pozo de 3,3 m x 4,4 m y 4 m de profundidad, con sedimentos resultado de la erosión de un sistema antiguo de cuevas profundas, en la Facies D, datada en 1,977 ± 0.002 Ma, formada por un flujo de escombros, mientras que los sedimentos suprayacentes pertenecientes a las facies E y F se depositaron en forma de acumulaciones de barro a lo largo del suelo de la cueva, con la afluencia ocasional de material arenoso, como resultado de una corriente de agua. Durante gran parte de su historia deposicional, los sedimentos de las facies E y F fueron anegados. En términos de composición, los sedimentos de las facies D, E y F, representan una mezcla de depósitos mal ordenados autóctonos y alóctonos que contienen una alta proporción de material peloidal rico en manganeso, derivado de la reelaboración de sedimentos fangosos por insectos. En general, los sedimentos van haciéndose más finos, con arenas gruesas con bloques en la base de la facies E, hasta barro puro en la parte superior de la facies F, con bloques de dolomita aislados y fósiles incrustados. Según el estudio tafonómico de Aurore Val et al (2015) y Brophy et al (2016), la diversidad del espectro de fauna, la presencia de animales con inclinaciones de escalada, la abundancia de especímenes completos y/o articulados y la falta de huesos modificados por carnívoros, indican que los animales se acumularon a través de una trampa en el sistema de cuevas sin acceso a los carroñeros. La co-ocurrencia de fósiles bien conservados, coprolitos de carnívoros, dientes de leche de hiena marrón, y algunos restos muy fragmentados y mal conservados apoya la hipótesis de una mezcla de sedimentos procedentes de cámaras distintas, recogidos en el fondo del sistema de cuevas por la acción de las corrientes de agua. Esta combinación de características tafonómicas explica el notable estado de conservación de los fósiles de Hominini, así como parte del material de la fauna asociada. Los restos no están asociados a herramientas.
Ericka N. L’Abbé et al (2015) han evaluado todas las fracturas evidentes en MH1 y MH2. La mayor parte de las fracturas son post-deposicionales, pero las del miembro superior derecho de la hembra adulta junto con posibles fracturas en la mano, indican claramente la resistencia activa a un impacto, mientras que las de la mandíbula del juvenil son consistentes con un golpe en la cara. La presencia de estos traumatismos apoya la hipótesis de la caída y suministra la primera evidencia de muerte de un australopitecino por causas diferentes a la depredación o la muerte natural, si bien en el caso de MH1 no se puede descartar la violencia interpersonal. Los Hominini de Malapa pudieron haber caído en un hoyo en la piedra caliza, posiblemente entre 5-10 m de profundidad. La superficie de impacto estuvo formada probablemente por grava, arena y guano de murciélago, con una moderada a alta capacidad de absorción de energía. Si bien las fracturas perimortem observadas en MH2 no son fatales por sí mismas, no se observan signos macroscópicos de curación, por lo que la muerte llegó poco después de las lesiones. Después de la deposición, un entierro natural rápido impidió el acceso de los carnívoros y la dispersión de los restos lo que añadido a un pH favorable, puede explicar la excelente conservación. La ubicación de MH1 y MH2 sugiere que entraron en la cueva y murieron en un lapso temporal breve. Posteriormente, el techo de la cámara se derrumbó y se sucedieron repetidas caídas de rocas. Más tarde, la cueva se llenó de barro y de otros materiales paleontológicos.
Lee R. Berger y otros, estudiaron los restos de Hominini,
pertenecientes a una hembra adulta y a un joven (Karabo = La Respuesta), sin poder encuadrarlos en taxones
existentes. Por ello, establecieron una nueva especie,Australopithecus sediba. Sediba
significamanantial inagotable en la lengua seSotho. Las diferencias entre ambos especímenes indican un amplio rango de variación en la especie (Ritzman et al, 2016).
Comparte conAustralopithecus africanus
numerosas características en la bóveda del cráneo, el esqueleto facial, la
mandíbula y los dientes. Pero otras características (dientes más pequeños,
pómulos menos pronunciados, nariz prominente, piernas más largas, rasgos de la
pelvis) lo acercan a Homo.No
obstante, en base a algunos rasgos entre los que destaca el pequeño tamaño del
cerebro, se ha incluido dentro del género Australopithecus.
Australopithecus sediba. Dientes derechos maxilares (izquierda) y mandibulares (derecha).
UW88-50 (MH1) elementos craneodentales en A. Vista superior; B. Vista frontal; C. Vistas laterales y D. mandíbula juvenil UW88-8 (MH1). (Berger, et al. 2010).
El esqueleto postcraneal, es similar al de otros
australopitecinos: Su cuerpo era pequeño, sus miembros superiores relativamente
largos, y retenía características primitivas en los miembros superiores e
inferiores. Difiere de otros australopitecinos y se acerca aHomo en
algunas sinapomorfías que anticipan la reorganización de la pelvis y miembros
inferiores en el H. erectus.
Hay que destacar que este anticipo en la reorganización de la pelvis se da
antes de que se produzca el aumento de tamaño del cerebro del feto, que se
producirá posteriormente en la filogenia humana: Al igual que en otras especies de hominini, incluidos los humanos modernos, el feto accedería a la entrada pélvica en dirección transversal. Sin embargo, a diferencia de los humanos modernos, el feto no necesitaría rotaciones adicionales para atravesar el canal de parto, lo que apoya la hipótesis de que la morfología pélvica de Australopithecus sediba es el resultado de restricciones locomotoras, más que estrictamente obstétricas (Laudicina et al, 2019).
Comparación de los coxis de Au. afarensis (AL 288-1), Au. africanus (Sts 14), Au. sediba (MH1), y H. erectus (KNM-WT 15000). Science.
Australopithecus sediba. MH1 y MH2. Science.
Australopithecus sediba. Reconstrucción utilizando MH1 y MH2. Lee R. Berger.
El holotipo de la especie es MH1, un joven (9-11 años) representado por un cráneo parcial, un fragmento de mandíbula y parte del
esqueleto postcraneal. Su tamaño cerebral (420 cc) se estima alcanzaba el 95%
del tamaño adulto. La sexta vértebra torácica muestra una neoplasia(Randolph-Quinney et al, 2016). Los restos son consistentes con un patrón ontogenético similar al de los simios (Cameron et al, 2017).
El paratipo es MH2, una hembra adulta representada por un
diente maxilar, una mandíbula parcial, y parte del esqueleto postcraneal. Del
análisis de las manos, con dedos cortos y pulgar relativamente largo, capaces
de realizar la pinza de precisión, puede inferirse la capacidad para producir
herramientas líticas.
Los largos brazos y la estructura de los pies sugieren
capacidad de trepa. Se deduce que esta especie disfrutaba de una amplia
variedad de comportamientos y podía explotar diversos entornos.
Se estima que la altura máxima de la especie era 1,56 m (Cameron et al, 2017).
En MH1 y MH2 se han encontrado restos de tejidos blandos.
Fueron encontrados otros restos, correspondientes al menos a
un bebé y a una hembra adulta, pero aún no se han publicado los resultados.
Ella Been y Yoel Rak piensan que MH1 y MH2 son en realidad una mezcla de restos de Homo y Australopithecus.
Los estudios confirman una evolución en mosaico:
Rasgos primitivos.
Tórax superior estrecho y cónico. Esta morfología limita el balanceo de los brazos al caminar. La forma de las costillas es más similar a la de los chimpancés que la la de los humanos (Bastir et al, 2016). Las vértebras cervicales indican que el cuello era más rígido que en Homo, una mayor elevación del brazo consistente con comportamientos de trepa y la ausencia de un control motor mejorado en los miembros superiores (Meyer et al, 2017).
Brazos largos y simiescos y escápula adaptados a la trepa e incluso la suspensión (Rein et al, 2016).
Pie similar al del chimpancé, aunque con un tobillo como el de Homo. El talón es todavía más primitivo que el de Australopithecus afarensis. Según Thomas C. Prang (2015)A. sediba es indistinguible de los simios africanos existentes en la configuración angular de su parte trasera del pie, lo que sugiere que carecía de arco longitudinal y combina de forma única la morfología articular talocalcaneal, responsable de la movilidad, con especializaciones de la articulación talonavicular que proporcionan estabilización mediotarsiana medial. A. sediba es muy similar a los gorilas existentes en la morfología de la articulación subastragalina. La similitud morfológica entre MH2 y las muestras de Sterkfontein, miembro 4 (STW 88, STW 102, STW 352) en las articulaciones talonavicular y talocalcaneal sugiere que A. sediba puede haber poseído un pie que era funcionalmente similar al de A. africanus. Esta combinación de morfologías sugiere que arboralidad puede haber sido significativamente adaptativa para los Australopithecus del sur de África.
Rasgos derivados en la línea del sapiens.
Curvatura baja de la espalda. Columna flexible. Mismo número de vértebras lumbares que Homo. Lordosis cervical, mitigación de la carga y soporte de la cabeza similares a Homo (Meyer et al, 2017).
Pelvis
Muñeca, mano y dedos adaptados al agarre de precisión. Pudieron fabricar herramientas sin perder la capacidad de escalada. Aunque no se hallaron herramientas líticas en asociación directa, la fabricación de herramientas (de piedra y hueso) se ha documentado en otros yacimientos contemporáneos locales, como Sterkfontein y Swartkrans. Los huesos de la mano presentan un mosaico único de características. Las falanges proximales e intermedias son ligeramente curvadas, como en Au. africanus y OH 7 y muestra un desarrollo de la envoltura sinovial del flexor que indica un poderoso agarre. Los huesos de la muñeca también muestran más similitudes con otros australopitecinos que con Homo y los ejes metacarpianos, sobre todo el del primer metacarpiano, son notablemente gráciles (aunque el tercer metacarpiano del juvenil masculino MH1 es más robusto, lo que sugiere un fuerte grado de dimorfismo sexual en la morfología mano). El pulgar es largo en relación con los otros dedos y relativamente más largo que el de los HAM, cayendo fuera del rango de variación. La longitud del pulgar pudo permitir un mayor control para la manipulación de los objetos pequeños (Kivell, 2015). La morfología trabecular de los metacarpianos es similar a la de los orangutanes, consistente con el uso locomotor con los dedos, mientras que la del pulgar es consistente con la manipulación humana (Dunmore et al, 2020).
Dientes.
Boca parecida a la humana.
Caninos pequeños.
Aunque relacionados, son distintos a los de Australopithecus africanus en tamaño, forma y trayectoria ontogenética y esto garantiza la separación filogenética con esta especie.
Los dientes de A. sediba (y tambien los de A. africanus) están más relacionados con los de Homo que los dientes de los austalopitecinos del Este de África (Irish et al, 2016).
Sugieren que Australopithecus sediba no desciende de Australopithecus afarensis.
Cuatro de los rasgos compartidos por Au. sediba, Au. africanus y los Homo tempranos no se ven en los primeros homínidos.
El cerebro, aunque es pequeño, posee una región frontal expandida lo que indica una avanzada reorganización de la materia gris.
Otros rasgos derivados
Caminaba con hiperpronación (con rotación hacia dentro de rodilla y cadera y con los pies ligeramente torcidos hacia dentro) y pasos cortos y rápidos, apoyando primero el borde exterior del pie en lugar del talón.
La mandíbula de MH1 presenta rasgos idénticos a otros australopitecinos, pero la mandíbula de MH2 es similar a la de Homo. Por el contrario, las dos vértebras lumbares de MH1, son similares a las de Homo, mientras que las de MH2 se parecen a las de los australopitecinos. Esto se ha interpretado como una gran variabilidad dentro de la especie.
Australopithecus sediba. Restos correspondientes a las extremidades superiores.
Características del Australopithecus sediba.
MH1 y MH2 se han datado en 1,977 Ma. por lo que representan
a losAustralopithecusmás modernos.
En 2012 se notificó el hallazgo de un esqueleto muy completo
de un joven, que podría corresponder con MH1 Karabo.
Australopithecus sedibaprobablemente desciende deA. africanus, y parece el australopiteco más cercano aHomo.
Tiene rasgos craneodentales y patrones de locomoción más avanzados que Sterkfontein Stw 53, Olduvai OH 62 y Koobi-Fora KNM-ER 3735, más o menos contemporáneos en el tiempo y asignados aH.habilis,por lo que esta asignación se vuelve incierta.
Sin embargo, para Kimbel y Rak (2017), MH 1 muestra afinidades inequívocas en su morfología zigomáticomaxilar y supraorbital con los cráneos de Sterkfontein miembro 4.
Su talón, más primitivo que el de Australopithecus afarensis, da pie a pensar a que forma parte de un linaje diferente al representado por A. afarensis y A. africanus (Thomas C. Prang (2015). El patrón de crecimiento facial es único entre los Hominini tempranos (Lacruz et al, 2015).
Australopithecus sediba podría estar en el camino evolutivo a Homo ergaster. Esta alternativa es defendida, entre otros, por Chris Stringer.
Homo habilis constituiría una una rama aislada y sin descendencia del árbol de Homo.
Dembo et al (2015) defienden que sediba podría clasificarse dentro de Homo.
Si AL-666-1 no es Homo y Stw 53, OH 62 y KNM-ER 3735 no son habilis, entonces sediba sería anterior y se podría admitir una secuencia filogenética Australopithecus sediba - Homo habilis - Homo erectus. Sediba comparte con erectus algunos rasgos craneales que no se exhiben en habilis.
En contra de esta hipótesis, la anatomía de los restos candidatos a Homo temprano es diferente a la del sediba.
El fósil de Homo temprano LD 350-1 es más derivado en su morfología dental y mandibular a pesar de ser anterior en el tiempo en 0,75-0,8 Ma.
Podría representar un grupo hermano que persistió durante algún tiempo después de la primera aparición de Homo. Ésta parece la hipótesis más probable, defendida entre otros por Donald Johanson.
En todo caso,sedibaes una prueba
más de que la confusa transición entreAustralopithecusyHomose produjo en
forma de mosaico, con cambios en la pelvis, aumento de la distancia de las
líneas temporales y reducción de la constricción postorbital antes de que
aumentara la encefalización. La reducción dental fue anterior a la
reorganización de cúspides.
El dimorfismo sexual ensedibaparece similar al de los humanos modernos.
Ecosistema
Del análisis de los tejidos adheridos a las placas dentales, se deduce que su alimentación incluía cortezas blandas, hojas, frutos y otros productos vegetales de los ambientes boscosos y cerrados, incluso duros, una alimentación generalista y diversa muy diferente a la del resto de los australopitecinos y primeros Homo (Amanda G. Henry y otros, 2012). Sin embargo, de acuerdo con estudios biomecánicos (Ledogar et al, 2016) y la forma del ramus (Ritzman et al, 2016), era incapaz de consumir alimentos duros (pero Daegling et al, 2016). Si Australopithecus sediba no estaba adaptado para consumir alimentos duros, el hecho de hallar rastros de tejidos duros en las placas dentales sugiere la competencia por los recursos con otras especies de Hominini.
Con respecto a la fauna asociada, hasta el momento se han recuperado algunos esqueletos parciales de bóvidos. Las especies sugieren un mosaico de praderas C3 y C4, con fuentes permanentes de agua cercanas, aunque los sedimentos sugieren una vegetación tipo C4 (Holt et al, 2016). Los huesos exhiben fracturas pero no marcas de corte y su origen y proceso de formación parece ser el mismo que el de los fósiles homínidos (Juliet K. Brophy et al, 2013).