miércoles, 9 de septiembre de 2015

Cueva del Ángel

Ubicación

Extremo suroccidental de la sierra de Aras, a 100 m de la base de la sierra y 620 m snm, término municipal de Lucena, provincia de Córdoba (España).

Descubrimiento

Un texto antiguo (Ramírez de Luque, 1792) revela la actividad minera en la Sierra de Aras y posiblemente en el propio yacimiento.
La cueva fue expoliada de forma continuada hasta 1995.

Mapa topográfico de la Cueva del Ángel. Barroso et al, 2012.

Descripción

El complejo kárstico presenta tres partes bien diferenciadas:
  1. Plataforma sedimentaria.
    • Relleno sedimentario localizado en el exterior, en una plataforma al aire libre de unos 300 m2 (100 m2 de rellenos potenciales) con un fuerte buzamiento hacia el Sur y grandes bloques de brechas, calizas y espeleotemas. Esta plataforma es el vestigio de una cueva anterior que por causas aún no conocidas perdió techos y paredes, que constituyó un asentamiento achelense utilizado para carnicería y cocinado, con restos de un hogar y útiles líticos con poca variedad.
    • El corte estratigráfico transversal J/K es el más importante de los cortes descubiertos hasta el momento. El techo está recubierto de una capa estalagmítica de 1 cm de espesor. Se observan precipitaciones secundarias de calcita rellenando todas las oquedades, típicas de la alternancia de periodos húmedos y secos. Se han diferenciado veinte niveles estratigráficos, con una subhorizontal o buzante en los niveles VII-XV, con morfología abombada que sugiere fenómenos de colapso postdeposicional. La ocupación fue continuada. Se han recuperado unos 9.000 restos óseos en muy buen estado, con marcas de corte, fracturas intencionadas para explotación de la médula ósea y un extremo grado de cremación, pertenecientes en su mayoría a grandes mamíferos. Es posible que los huesos fuesen utilizados como combustible. Los taxones mejor representados de forma continuada a lo largo de la secuencia son Equus, Bos/Bison y Cervus, con dominio de los adultos. El acceso de los Homo fue primario en la mayor parte de los casos, aunque se ha identificado también un acceso secundario. Asimismo, se han obtenido más de 5.000 piezas líticas, la mayoría de sílex local, con presencia de todas las fases de la producción, correspondientes al Achelense Final, con ausencia de Levallois. La tipología no cambia a lo largo de la estratigrafía. Muchas piezas están desgastadas por el uso. Las dataciones están dentro de un intervalo entre hace 329-179 ka.
      • Gran Unidad Superior (I). Se extiende desde el techo (-215 cm) hasta -265 cm, con poco material arqueológico. Comprende los niveles I-VI.
      • Gran Unidad Inermedia (II). Hasta -450 cm. Comprende los niveles VII-XV. Encierra un material arqueológico considerable, compuesto esencialmente por restos óseos, en su mayoría quemados, y útiles líticos.
      • Gran Unidad Inferior (III). A partir de -450 cm hasta -580 cm, sin haber alcanzado la roca base. Comprende los niveles XVI-XX. Menor proporción de material arqueológico.
  2. Covacha del Ángel.
    • Al Nordeste de esta plataforma aparece una pequeña cavidad de unos 18 m de longitud por 3 m de anchura que con toda probabilidad es el único vestigio de la cavidad primigenia. Esta galería presenta bloques de derrumbe y un fuerte desnivel. En ella se observa la rotura del relleno sedimentario, así como su total desaparición. No ha sido excavada. En 2016 se descubrió una sala de 3 m de altura con presencia de huesos e industria.
  3. Sima del Ángel.
    • Bajo el suelo de esta cavidad se desarrolla una sima vertical de unos 100 m de profundidad en cuya base se ha formado un cono de derrubio de unos 70 m de altura, compuesto por la caída de bloques, clastos, arcillas, huesos y multitud de restos de industria lítica. En 2009 se innauguró un túnel de 81 que conectó la sima con el exterior para uso turístico y facilitar la investigación.
Cueva del Ángel. Estratigrafía del corte J/K. Barroso et al, 2012.

Excavaciones y Estudios

  • 1995-1996. Se autoriza la primera excavación arqueológica, dirigida por Cecilio Barroso Ruiz y Daniel Botella Ortega, que se efectuó en la plataforma exterior. El objetivo de la actuación de urgencia fue determinar la existencia de depósitos arqueológicos, su delimitación en superficie y estudiar y realizar un proyecto de conservación, descubriéndose una estratigrafía rica en la parte superior del sitio. Después de delimitar la extensión del yacimiento arqueológico, el sitio fue limpiado de un importante sedimento de revuelto de arcillas rojas que lo cubría, apareciendo debajo parte de la secuencia junto a enormes bloques de piedra caliza, que fueron dejando al descubierto un pozo y restos de trinchera que evidenciaba antiguas actividades mineras.
  • 2002-2003.  Se retranquearon las cuadrí culas K6, K7 y K8, para obtener un corte estratigráfico en la pared sur del pozo minero que evaluara el potencial del yacimiento.
  • 2005. Inicio de las excavaciones sistemáticas en la plataforma exterior. Proyecto general de investigación.
  • 2008. Continuación del proyecto general de investigación.
  • 2013. Proyecto general de investigación. Se inició la excavación de la sima, a partir de un sondeo de 6 m2 que ha proporcionado restos Homo sapiens asociados a cerámicas neolíticas, calcolíticas y del bronce. Una prospección geofísica identificó un relleno de unos 10 m de profundidad.
  • 2014. Se estudiaron los restos de al menos 50 individuos arrojados a la cavidad hace 7-5 ka. Inicialmente, los enterramientos se produjeron en la covacha; dado el pequeño tamaño de la cueva, los restos eran arrojados periódicamente a la sima con el fin de dejar espacio para nuevas inhumaciones. Los restos muestran marcas de corte e indicios de que fueron quemados de forma intencionada.
  • 2015. Se hallaron 15 variedades de semillas, muchas de ellas comestibles, en estratos entre 300-200 ka, lo que supone el vestigio más antiguo de consumo de semillas por humanos. Algunos de estos restos pertenecen a variedades de aceituna. Además, un hogar de 2,60 m de diámetro y útiles de piedra con restos de resina, que corresponderían a mangos de madera.
  • 2016. En la Sima del Ángel se instalaron elementos de seguridad para impedir caídas de piedras y desplazamientos de los rellenos. En la Covacha del Ángel, se efectuaron labores de limpieza y se desubrió una sala de 3 m de altura con presencia de huesos e industria.

Bibliografía

Recursos web

lunes, 7 de septiembre de 2015

El poscráneo de los Homo de la Sima de los Huesos

En la Sima de los Huesos (Atapuerca, Ibeas de Juarros, Burgos, España) se hallaron más de 6.700 fósiles (80% de los conocidos del Pleistoceno Medio en todo el mundo) de unos 28 individuos: un niño, doce adolescentes, diez jóvenes, y diez adultos de más de 25 años de los que solo tres superarían los 35. Ninguno superaría los 45. Sexos equitativamente representados, con una diferencia de tamaño de un 10%. 0,4 Ma. Los primeros, descubiertos en 1976, por el equipo de Trino Torres. Lee J. Arnold et al (2014) han obtenido una datación mínima de 427 ± 12 ka.
Estratigrafía y dataciones de la Sima de los Huesos. Lee J. Arnold et al, 2014.
Laura Rodríguez García, en su tesis doctoral sobre los huesos largos (2013), considera que estos homínidos eran igual de eficientes que los HAM. Incluso la flexión y giro del antebrazo sería más eficiente. Los huesos de las extremidades inferiores poseen más cortical, lo que les permitiría soportar mucho más peso.
Conocido como Cráneo 17, este fósil encontrar desde de España Sima de los Huesos representa uno de los cráneos más completos de un homínido primitivo que se ha encontrado, y es sólo uno de los hallazgos más emblemáticos de la web.  Crédito de la imagen: Javier Trueba / Madrid Scientific Films
Sima de los Huesos. Cráneo 17. Crédito de la foto: Javier Trueba / Madrid Scientific Films.
  • 17 cráneos (J. L. Arsuaga et al, 2014). Son muy similares entre sí y distinguibles de los de otras poblaciones europeas de datación similar, lo que indica que estas poblaciones pertenecían a diferentes demos.
    • El patrón morfológico es consistente con características neandertales derivadas en la cara anterior y la bóveda, muchas de las cuales están relacionadas con el aparato masticatorio incluyendo su uso como tercera mano, con gran desgaste de los incisivos.
      • Los autores sitúan esta población en las raíces de la evolución neandertal, sugieriendo que la modificación facial fue el primer paso, dentro de un patrón de mosaico, con diferentes módulos anatómicos y funcionales evolucionando a un ritmo diferente.
        • Están presentes características de los neandertales clásicos, como la forma triangular de la cara y los arcos superciliares, prognatismo, mandíbulas inferiores robustas, patrones de las cúspides dentales y dientes pequeños en la parte posterior de la mandíbula, pero no se hallan otras como el moño occipital o el desarrollo cerebral.
      • Taxonómicamente, no es posible clasificar esta población dentro de heidelbergenesis, pero tampoco en neanderthalensis.
    • Estas observaciones confirman el Modelo de Acumulación (Accretion Model) propuesto por Hublin, que distingue varias etapas o saltos en la evolución neandertal (Dean et al, 1998). En este modelo, los restos de la Sima de los Huesos se incluyen dentro de los preneandertales, junto con Reilingen, Steinheim y Swanscombe. Tattersall (2011), considera que los restos de la Sima de los Huesos son de filiación desconocida, al igual que los de Steinheim y Reilingen.
      • Las poblaciones del Pleistoceno Europeo se repartían por una vasta zona evolucionando de forma aislada en respuesta a los cambios ambientales e hibridando ocasionalmente.
    • 10 individuos padecían cribra orbitaria, extensión de perforaciones en el techo de la cavidad de las órbitas. En varios casos se observan traumatismos curados. La forma no es tan alargada como en los neandertales, sin la protuberancia occipital y el aplanamiento lamboidal. La anchura máxima se sitúa en la parte inferior del cráneo, en las crestas mastoideas, lo que proporciona un perfil con forma pentagonal baja (morfología primitiva; los neandertales tienen un contorno posterior redondeado y los sapiens un contorno pentagonal alto). En cuanto al hueso occipital, no presentan la proyección bilateral del torus occipital ni la depresión media de los neandertales. Por encima del torus occipital aparece un área deprimida que pudira ser un primer estadio de la fosa suprainiánica de los neandertales. El borde superior de la escama temporal es alto como en neandertales y sapiens (en erectus es bajo). Apertura nasal amplia pero sin presentar el borde inferior afilado de los neandertales. Apófisis mastoideas bien desarrolladas y proyectadas hacia abajo (en los neandertales poco proyectadas). En resumen, Arsuaga et al (1997) enfatizan la presencia de características arcaicas ausentes en los neandertales junto con características derivadas pero menos desarrolladas que en los neandertales y el parecido con los cráneos de Saccopastore. Menor tamaño que neandertales y humanos modernos (también menor grado de encefalización):
    • Cráneo 4: 1.390 cc.
    • Cráneo 5: 1.125 cc.
    • Cráneo 6: 1.220 cc.
  • 20 mandíbulas (medio centenar de piezas), cuatro de ellas enteras. Son robustas, sin mentón. Cuerpo mandibular más bien bajo, con el borde inferior ancho, plano, paralelo a la fila de dientes y con un acusado reborde. Ramas ascendentes largas, poco altas y con el borde superior poco escotado. En seis individuos se observa una artrosis degenerativa de la articulación del hueso temporal y la mandíbula.
  • Más de 500 dientes.
    • Incisivos superiores en pala.
    • Caninos con cíngulos gruesos.
    • Premolares no molariformes.
    • Molares decrecientes, ya del primero al segundo, tanto en largo (igual que los neandertales) como en ancho (típicamente moderno).
    • Son frecuentes las hipoplasias en el esmalte (siete individuos), pero con una proporción baja en el total, lo que indica un menor estrés alimenticio que el que se ha advertido en otros grupos humanos. Las hipoplasias se producen a los tres años, edad del destete.
    • No se ven signos de caries, que aparecerían con el consumo de cereales, pero sí de la utilización de mondadientes. Hay marcas en la superficie externa de los dientes anteriores causadas por filos silíceos al utilizar la dentadura como herramienta.
    • Elevado desgaste dental, incluso en los dientes de individuos jóvenes.
      • En los dientes posteriores, aparecen estrías con orientaciones diversas y agujeros en las superficies oclusales, lo que indica una dieta muy abrasiva.
        • Las estrías verticales indican una dieta cárnica.
        • Las estrías en otras direcciones indican una dieta vegetal, más difícil de masticar, que exige movimientos en horizontal de las mandíbulas.
      • Los dientes anteriores están muy desgastados lo que indica su uso como herramienta.
    • Para María Martinón-Torres y José María Bermúdez de Castro (2011) la morfología de estos dientes es completamente neandertal y por ello estos individuos de Atapuerca pertenecen a un grupo o especie diferenciados, pues estos rasgos están ausentes en los restos de los demás yacimientos de similar datación.
    • El M1 superior presenta un mosaico de características neandertales y sapiens (María Martinón-Torres et al, 2013).
  • 42 restos de clavículas, 114 de escápulas, 645 restos de vértebras, 466 de costillas.
    • Las clavículas tienen como rasgo distintivo su longitud, su fuerte curvatura en ese y el fuste comprimido de modo anteroposterior, con sección ovoide.
    • Conducto medular largo en los atlas y corto en los axis, que son anchos en comparación con los modernos.
  • 110 restos de húmeros, 65 de cúbitos y 85 de radios.
    • En el húmero, la cabeza articular es oval con un ángulo de torsión bajo. Varios refuerzos en la zona articular del codo.
  • 173 restos de fémures, 20 de rótulas, 89 de tibias y 105 de peronés. Los huesos largos son muy fuertes.
  • 121 huesos del carpo, 103 del tarso, 93 metacarpianos, 80 metatarsianos, 208 falanges de pies y 304 falanges de manos. En los restos de niños, se dan varios casos de líneas de Harris, consecuencia típica de enfermedades infantiles.
    • En la campaña de 2012 se halló una falange distal del meñique del pie de un niño. El hallazgo de un hueso tan pequeño del pie apoya la hipótesis de que la Sima de los Huesos era un lugar de enterramiento y descarta que los restos fuesen acumulados por depredadores.
    • Adrián Pablos el al (2013) han comparado 25 astrágalos de 14 individuos (once adultos y tres inmaduros) de la Sima de los Huesos (Atapuerca), con los correspondientes a sapiens y neanderthalensis.
      • Los astrágalos de la Sima de los Huesos son verticalmente más cortos que los de Homo sapiens del Pleistoceno y muestran una cabeza más corta y una faceta del maléolo lateral más amplia.
      • Algunos caracteres comunes con los neandertales son consistentes con la hipótesis de que la población de la Sima de los Huesos y los neandertales son grupos hermanos.
        • Una amplia faceta del maléolo lateral.
        • Una altura troclear intermedia entre los HAM y los sapiens del Pleistoceno.
        • Una breve faceta en el calcáneo medio.
      • Sobre la base de estos fósiles, asignándoles el sexo según su tamaño, se ha calculado una estatura media de 174,4 cm para los hombres y 161,9 cm para las hembras, similar a la obtenida en base a los huesos largos de este mismo sitio.
    • Adrián Pablos et al (2014) han estudiado los 29 restos de calcáneo hallados en la Sima de los Huesos, pertenecientes a 15 individuos (nueve adultos, dos adolescentes y cuatro individuos inmaduros).
      • Los calcáneos de la Sima de los Huesos son amplios y robustos, con un tubérculo proporcionalmente largo, grandes superficies articulares y lo más importante, muestran un sustentáculo del astrágalo muy proyectado. Estas características son compartidas con los neandertales.
      • Sobre la base de estos fósiles, asignándoles el sexo según su tamaño, se ha calculado una estatura media de 175.3 cm para los varones y 160,6 cm para las hembras, similar a la obtenida utilizando otras partes del esqueleto del sitio.
  • Hioides y huesecillos del oído. I. Martínez ha deducido de su análisis la capacidad de habla de aquellos individuos.
  • Pelvis 1 (Elvis). 0,5 mda. Pelvis con fuertes inserciones musculares correspondientes a una piernas muy robustas. La pelvis más ancha y mejor conservada de todo el registro fósil, junto con otros restos del esqueleto, correspondiente a un varón muy corpulento que padeció importantes enfermedades degenerativas desde mucho antes de morir, con más de 45 años de edad. Debió medir entre 1,70-1,75 m y pesar 90-95 kg. Dichas enfermedades debieron de producirle intensos dolores en las zonas lumbar y pélvica que le obligaban a caminar encorvado y, probablemente, a utilizar un bastón para mantenerse erguido. Debido a sus mermadas condiciones físicas, este individuo no estaba en condiciones de cazar ni de llevar a cabo otras tareas útiles para su comunidad, lo cual ha llevado a la conclusión de que, además de alimentación, el anciano debió también de recibir ayuda para seguir el ritmo de la marcha de su gente, un grupo de cazadores nómadas que se desplazaban junto a las manadas de herbívoros de los que se alimentaban.
  • Agamenón, Atapuerca 4. Caja craneal completa, sin su parte facial. Se observa una artritis avanzada en los cónditos occipitales, con importante dificultad y dolor en los movimientos de la cabeza y los dos conductos auditivos obstruidos por hiperostosis. El frontal huido, la bóveda baja y el occipital alargado y anguloso hacia atrás del cráneo 5 no son compartidos en el cráneo 4. La bóveda relativamente baja y el frontal estrecho son rasgos comunes.
  • Miguelón, Atapuerca 5 (AT 700). Descubierto en la Sima de los Huesos (Atapuerca) entre 1992 y 1993 por Juan Luis Arsuaga. Su antigüedad se estima en 0,3 Ma; su capacidad craneal es de 1.125 c.c. Se trata del cráneo más completo de heilderbengensis descubierto hasta ahora. (Arsuaga et al. 1993; Johanson and Edgar 1996). Se ha identificado la mandíbula que le corresponde.
    • Morfología facial similar a la de los neandertales (prognatismo, huesos nasales sobresalientes y amplios, posición avanzada de la dentición inferior, espacio retromolar). En relación al neurocráneo, la cara es muy grande. Placa infraorbitaria ligeramente cóncava, con el margen inferior ligeramente curvado (en los neandertales la placa infraorbitaria es plana con el margen recto).
    • Macizo maxilar grande, proyectado hacia delante sin fosa canina entre el saliente nasal y el pómulo ni fosa maxilomalar entre el pómulo y la pared de las raíces de los molares superiores. Orbitas grandes y casi redondas. Prognatismo y adelantamiento del arco de los dientes que deja un espacio retromolar entre el talón de la última muela inferior y el borde anterior de la rama ascendente de la mandíbula.
    • Padecía varias alteraciones en la boca. La más grave, una infección en el lado izquierdo tras la fractura de un diente.
    • Del estudio de la lateralidad del cerebro, se concluye que era diestro.
  • Benjamina. Individuo de 10 años de edad. Padeció craneosinostosis, enfermedad que produce una sutura anticipada de los huesos craneales, lo que se traduce en un retraso sicomotor.
En 1998 apareció un bello bifaz (Excalibur) de perfecta talla y atractivo color marrón y rojo. Se ha interpretado en términos simbólicos, pues nunca fue utilizado. Datado en 0,4 Ma. En la campaña de 2012 se encontró un bifaz adicional.

Algunos rasgos poscraneales de los Homo de la Sima de los Huesos.
(A) Tercera vértebra lumbar (L3). La vista craneal de VL2, presenta un proceso transverso muy largo y orientado dorso-lateralmente.
(B) Húmeros de subadulto (izquierda) y adulto (derecha) mostrando un pilar medial delgado y una fosa del olécranon amplia y profunda.
(C) Primer metacarpiano (MC1). Vista palmar correspondiente a un juvenil (izquierda) y a un adulto (derecha). Ambos muestran una fuerte unión con el músculo oponente del pulgar.
(D) Coxis. Vista ventral mostrando una fuerte espina ilíaca inferior anterior fuertemente trenzada (flecha blanca) y un surco profundo para el músculo iliopsoas (flecha negra).
(E) Fémures proximales en vista posterior, mostrando un bajo ángulo del cuello, grandes crestas gluteales y una fosa trocantérica bien desarrollada. La sección de la diáfisis es redondeada y muestra la ausencia de una pilastra.
(F) Astrágalo. Vista dorsal que muestra una faceta maleolar expandida lateralmente (flecha) y ejes paralelos de la tróclea.
Juan Luis Arsuaga et al, 2015.
Juan Luis Arsuaga, José-Miguel Carretero, Carlos Lorenzo, Asier Gómez-Olivencia, Adrián Pablos, Laura Rodríguez, Rebeca García-González , Alejandro Bonmatí, Rolf M. Quam, Ana Pantoja-Pérez, Ignacio Martínez, Arantza Aranburu, Ana Gracia-Téllez, Eva Poza-Rey, Nohemi Sala, Nuria García, Almudena Alcázar de Velasco, Gloria Cuenca-Bescós, José María Bermúdez de Castro y Eudald Carbonell presentan una caracterización completa del postcráneo del paleodemo de la Sima de los Huesos.
  • Cuerpo ancho, una plesiomorfia heredada de los Hominini tempranos. El peso medio, a partir de las cabezas femorales de cinco adultos, ha resultado 69,1 kg, 6,3 kg por debajo del peso medio de los neandertales. Las clavículas son más largas que las de los humanos modernos y muestran una curvatura de tipo II en el plano coronal que está presente en todos los Homo anteriores al sapiens. Este carácter se ha relacionado con una posición más lateral y superior de las escápulas. En cuanto el tórax, la ausencia de costillas torácicas medias completas, hace que sea difícil evaluar la forma del esqueleto costal, pero posiblemente fuera más amplio: el tamaño dorsoventral de la única primera costilla recuperada, es mayor que en los humanos modernos y los neandertales y una segunda costilla incompleta sugiere que era mas larga dorsoventralmente que la de Kebara 2. La pelvis es muy diferente a la de los humanos modernos, muy amplia y elíptica, con un sacro muy ancho, pronunciada abertura de las alas ilíacas en sentido lateral, como en los australopitecinos y ramas púbicas largas. También es más amplia que la de los neandertales.
  • Reducida lordosis lumbar, una característica derivada compartida con los neandertales.
  • Estatura similar a la de los humanos modernos de latitudes medias, que apareció por vez primera hace 1,6-1,5 Ma. La estatura media se ha estimado a partir de 24 huesos largos completos de las extremidades superiores e inferiores en 163,6 cm, 3 cm más que la de los neandertales.
  • La cavidad glenoidea es más alta y estrecha que en los humanos modernos, lo que se refleja en un bajo índice glenoideo. Es dominante la posición dorsal del surco axilar del músculo redondo menor, como en los neandertales. La curvatura de las clavículas en el plano transverso cae dentro de la variación normal en los humanos modernos; sin embargo, en el plano coronal, es similar a la de los neandertales. La mayoría de los húmeros y radios son similares a los de los neandertales. La mano muestra características propias del agarre de precisión, similares a las descritas para neandertales y humanos modernos. Como en los neandertales, el poderoso agarre de precisión se ve reforzado por un pulgar robusto y una musculatura flexora bien desarrollada.
  • Grandes cabezas femorales en algunos individuos, un rasgo que apareció por primera vez durante el Pleistoceno Medio en África y en Europa. Los fémures muestran el patrón morfológico plesiomórfico que aparece en los miembros más tempranos del género Homo mientras que las tibias son similares a las de los neandertales. En comparación con los humanos modernos, el astrágalo de los neandertales muestra facetas maleolares laterales y cabezas talares amplias. En los Homo de la Sima de los Huesos, la faceta peronea es significativamente más amplia y la cabeza talar más estrecha; al igual que en los neandertales la tróclea es relativamente amplia con bordes paralelos mientras que los humanos modernos es relativamente estrecha y en forma de cuña. Todos los Homo del Pleistoceno (no sapiens) muestran unos astrágalos con una tróclea más alta que en los humanos modernos, permitiendo una gran capacidad de flexión dorsal y plantar del tobillo. Los calcáneos de los neandertales son anchos, con una plataforma del astrágalo proyectada y un tubérculo largo. En los Homo de la Sima de los Huesos, los calcáneos son también anchos y la plataforma del astrágalo aparece incluso más proyectada. Los metatarsos de los humanos modernos, neandertales y Homo de la Sima de los Huesos son muy similares, excepto por la amplia base de los MTIII–V, una característica potencialmente derivada compartida por los Homo de la Sima de los Huesos y los neandertales. Las falanges proximales presentan hipertrofia del eje y la falange distal del pulgar muestra una tuberosidad distal expandida, como en los neandertales.
  • El nivel de dimorfismo es similar al de los humanos modernos.
Aunque los Homo de la Sima de los Huesos estaban menos encefalizados que los neandertales, comparten con estos muchas características poscraneales. La mayoría de estas características parecen ser retenciones plesiomórficas o de polaridad filogenética incierta, pero otras son consideradas apomorfias neandertales. Sin embargo, el conjunto completo de características derivadas presentes en los neandertales aún no se observa en la población de la Sima de los Huesos.

  • Algunas especializaciones neandertales no están presentes en los Homo de la Sima de los Huesos, tales como la orientación lateral de las apófisis transversas lumbares, la articulación carpometacarpiana del pulgar menos en forma de silla una rama superior del pubis extremadamente delgada.
  • Algunos rasgos relevantes, son polimórficos en el Homo de la Sima de los Huesos, como la morfología general del radio, la morfología de la frontera axilar de la escápula y la forma de la porción distal del húmero. En los neandertales se produce una pérdida de variación y fijación de caracteres.

La evidencia postcraneal es consistente con la hipótesis de que los Homo de la Sima de los Huesos son un grupo hermano de los neandertales. 

La evolución del poscráneo se produjo en mosaico, tanto a nivel general como en detalle. El bauplan en el género Homo permaneció en estasis por largo tiempo, caracterizado por un cuerpo amplio con respecto a la estatura. El Homo sapiens inicia un bauplan estrecho relacionado seguramente con implicaciones energéticas que han sido invocadas como una de las razones de éxito de la especie, aunque el cambio principal (la geometría diafisaria de las extremidades inferiores en la sección transversal), pudo haber surgido después del origen del H. sapiens.

sábado, 29 de agosto de 2015

Nuevo estudio de dos huesos de Dikika confirma carnicería con útiles líticos hace 3,39 Ma

Ubicación de DIK-55
Las marcas en un hueso largo de una criatura del tamaño de un antílope medio y en un hueso de la costilla de un animal del tamaño de un búfalo, hallados en la localidad DIK-55 de Dikika, Hadar, Etiopía, datados en 3,39 Ma, procedentes de sedimentos algo más antiguos que los que contenían restos de Australopithecus afarensis, fueron interpretadas por McPherron et al (2010) como el resultado del descarnamiento con herramientas líticas.

Manuel Domínguez-Rodrigo, Travis Rayne Pickering y Henry T. Bunn (2011) consideraron por el contrario que las marcas tenían un origen accidental al ser los huesos comprimidos en sedimentos abrasivos.

Detail of the marks on a fossilized rib bone, one of the two controversial bones. Image: Zeresenay Alemseged
Dos de la marcas objeto de estudio
Jessica C. Thompson, Shannon P. McPherron, René Bobe, Denné Reed, W. Andrew Barr, Jonathan G. Wynn, Curtis W. Marean, Denis Geraads y Zeresenay Alemseged, han realizado un estudio mediante nuevos métodos estadísticos, que confirma la interpretación original de una carnicería con instrumentos de piedra.
Según los autores, los huesos fueron golpeados con enorme fuerza y ​​varias veces. Las marcas son más grandes, y tienen características diferentes a las de otros huesos del yacimiento.
Comunicado de Emory Health Sciences
Australopithecus afarensis
Lomekwiense y Preolduvaiense 

martes, 25 de agosto de 2015

¿Por qué los cromosomas X de humanos y chimpancés son más parecidos que los autosomas?

Fig 1.  Distribution of incomplete lineage sorting (ILS) along the human genome for autosomes (A) and the X chromosome (B).
Distribución de ILS en el genoma humano para autosomas (A) y cromosoma X (B).
El incomplete lineage sorting (ILS) puede producir discrepancias entre el árbol filogenético para un gen específico o un segmento genómico y el árbol filogenético a nivel de especie. Si una especie ancestral es polimórfica y se divide en dos linajes descendientes, los diferentes alelos pueden ser retenidos en los dos linajes. Si uno de estos linajes se divide de nuevo relativamente pronto, entonces las tres especies pueden portar estos alelos. Con el tiempo, cada linaje perderá algún alelo debido a la deriva genética o a la selección. Los análisis de las secuencias de todo el genoma de los humanos, los chimpancés y los gorilas indican que los árboles de genes de una parte sustancial del genoma no coinciden con la filogenia global a nivel de especie: En el 15 % del genoma, los humanos están más estrechamente relacionados con los gorilas y en otro 15% el genoma de los chimpancés está más estrechamente relacionado con el de los gorilas que con el de los humanos. Sin embargo, los cromosomas X de humanos y chimpancés son más parecidos.

Julien Y. Dutheil, Kasper Munch, Kiwoong Nam, Thomas Mailund y Mikkel H. Schierup han realizado un análisis detallado de los genomas de humanos, chimpancés, gorilas y orangutanes, construyendo un modelo de especiación por aislamiento.

De acuerdo con los autores, la escasa diferencia entre los cromosmas X de humanos actuales y himpancés puede explicarse completamente por regiones que comprenden un tercio del cromosoma X, donde el polimorfismo en el ancestro de los humanos y los chimpancés fue severamente reducido. La selección de fondo puede explicar un máximo el 10% de esta reducción, mientras que el resto pudo deberse a varios barridos selectivos fuertes en las especies ancestrales.

Por otra parte, se produjeron barridos adicionales en estas regiones de baja diversidad, de forma independiente en las poblaciones de Europa y Asia Oriental después de su divergencia hace menos de 100 ka. En estas regiones está ausente la introgresión neandertal, lo que sugiere que fueron las primeras en formar barreras reproductivas, impulsando la especiación.

jueves, 20 de agosto de 2015

Homo habilis

Homo habilis. Mapa conceptual.

Homo habilis, Louis Leakey, Tobias y Napier, 1964.

Homo habilis, surge a partir de un australopitecino grácil, sin que podamos precisar cuál. Es posible que no lo hayamos encontrado todavía o que nunca aparezca.

Edad. 2,5 Ma (Enfriamiento del clima y desarrollo de la sabana africana) – 1,6 Ma.

Los restos aparecieron en Olduvai a mediados de los sesenta y hasta 1964 fueron atribuidos a Australopithecus. La especie estuvo sometida a una gran polémica, que disminuyó en 1968 con el hallazgo de OH24. En 1986 se descubre OH62 con rasgos típicamente simiescos, y las dudas volvieron a surgir. En particular, se especula sobre la posibilidad de que los restos de Olduvai pertenezcan a la misma especie que los de Koobi Fora (Homo rudolfensis) o de qué forma los restos de estos dos yacimientos se pueden asociar a especies distintas.

Sigo el criterio de Alexeev y Wood de reservar habilis para los hallazgos de Olduvai.


PRINCIPALES FÓSILES
YACIMIENTOS
CRÁNEOS
POSCRÁNEOS
Olduvai, Tanzania
Louis y Mary Leakey y Philip Tobias
N. Mbuika.
Peter Nzube.
Donald Johanson y Tim White
OH 4
OH 6
OH 7
OH 13
OH 16
OH 24 Twiggy
OH 62
OH 65
OH 7
OH 8
OH 35
OH 62

1_Spoor-et-al_OH7_John-Reader_NATURE_ed
OH 7. John Reader.
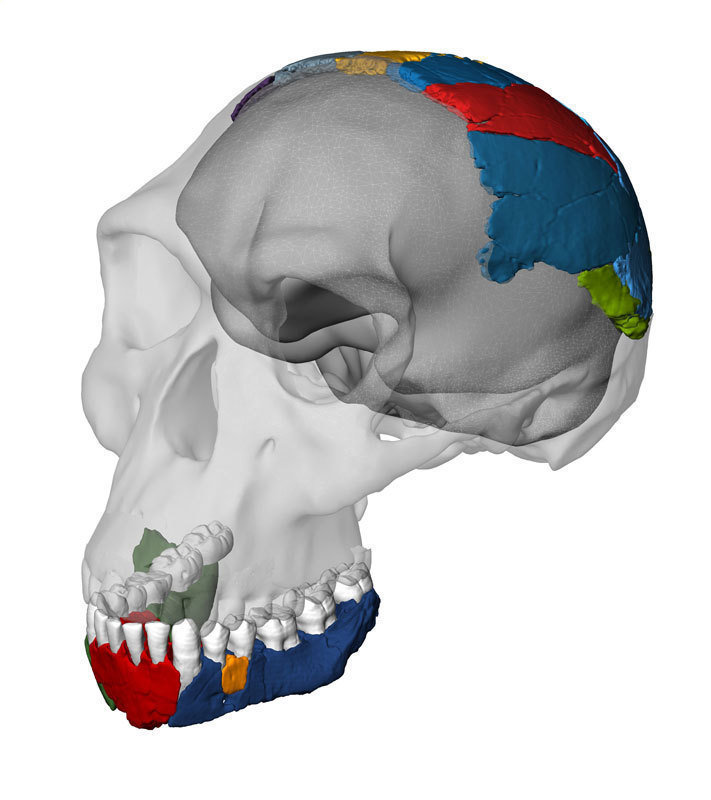
Reconstrucción del cráneo de OH 7. Las partes grises están basadas en KNM-ER 1813.

Holotipo

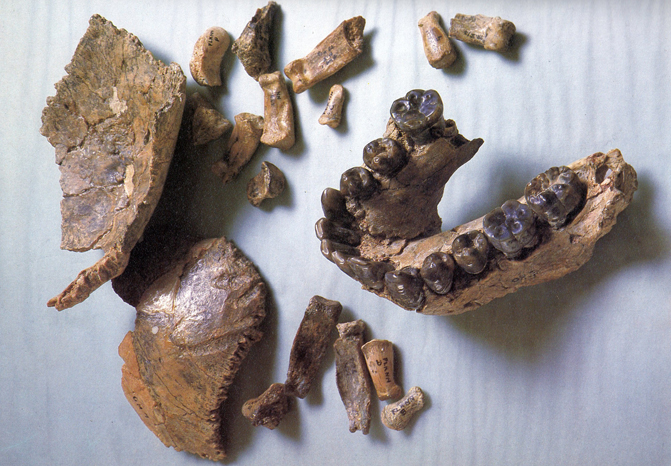
El holotipo de Homo habilis es OH 7 Niño de Johnny (Johnny´s child). Individuo joven hallado en 1960 por Jonathan Leakey, hijo de Louis y Mary. Huesos parietales, mandíbula provistas de 13 dientes y M3 sin erupcionar y 21 huesos de la mano que justificaron el nombre de habilis. 1,8 Ma.
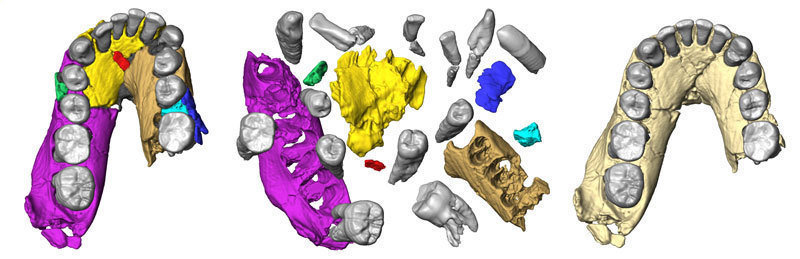
La mandíbula aparece distorsionada lo que ha obstaculizado los intentos de comparar este espécimen con otros fósiles.

Mandíbula de OH 7 tal como se ha preservado (izquierda), en partes separadas (centro) y reconstruida (derecha)

Fred Spoor et al (2015) han reconstruido virtualmente la mandíbula y los parietales de OH 7, y los han comparado con otros fósiles de Homo temprano.
  • La mandíbula reconstruida muestra un carácter muy primitivo, con una arcada dental larga y estrecha más similar a Australopithecus afarensis que a otros Homo. 
  • Esta morfología no es consistente con una sola especie de Homo antiguo. 
    • En concreto, la morfología de la mandíbula de OH 7 es incompatible con los fósiles asignados a Homo rudolfensis y con el maxilar AL 666-1. Este último es morfológicamente más derivado que el de OH 7, aunque es 500 ka años más antiguo.
    • OH 7 y KNM-ER 1802 son muy similares en la forma de la arcada dental y están más cerca de OH 13 y A. afarensis que de H. sapiens y H. erectus.
    • Esto sugiere que el linaje de H. habilis se originó antes de hace 2,3 Ma años.
  • De la reconstrucción de los parietales, se deduce un volumen endocraneal de 729-824 cc, mayor que el obtenido en cálculos antreriores.
  • La edad a la muerte se ha estimado entre 9-13,2 años, de acuerdo con los estudios radiográficos e histológicos, la longitud de las raíces de M2 y los ratios estimados de formación de esmalte y dentina en KNM-WT 15000.
Por consiguiente, la expansión del tamaño del cerebro en el Homo habilis apareció antes que los cambios en la forma de la cara.

 Yacimientos.

Lechos I y II de Olduvai (Tanzania).
Reconstrucciones virtuales de KNM-ER 1805 (A) y OH 24 (B). En B las partes grises representan elmentos completados por espejo. Escala 5 cm. David Lordkipanidze et al, 2013.

Paratipos.

  • OH 4. Fragmentos del cráneo y dientes.
  • OH 6. Fragmentos del cráneo y dientes.
  • OH 8. Descrito en 1960. Dos falanges, fragmento de muela y varios huesos de un pie, completos excepto el talón y la punta de los dedos de un adulto. Su edad se estima en 1,8 Ma, con trazos mixtos entre mono y hombre, se desplazaba bípedamente. Los huesos conservan marcas de mordedura de cocodrilo (Aramendi et al, 2017; Patel et al, 2018).
  • OH 13 Cinderella. Leakey, Tobias y Napier (1964). Mandíbula, dedos y fragmentos de cráneo de un adolescente, con una antigüedad de 1,6 Ma. y una capacidad craneal de 650 cc.
  • OH 16, George. Leakey, Tobias y Napier (1964). Huesos de los dedos y partes muy fragmentadas del cráneo. Su edad se estima en 1,7 Ma. y su capacidad craneal en 640 cc.
  • OH 24, Twiggy. 1968. 1,8 Ma. Peter Nzube. Leakey, Clarke y Leakey. Cráneo aplastado y cinco dedos. 590 cc.
  • OH 35. Fragmento distal de tibia. Presenta marcas de mordedura que no caen en el rango de las producidas por cocodrilo (Aramendi et al, 2017). Según Marchi et al (2019), la fuerza relativa fibular/tibial se aproxima a la de los grandes simios, lo que indica vida arbórea y, en particular, la capacidad de escalada vertical
  • OH 62. Dik-dik hominid. 1986. 1,8 Ma. Tim White. Johanson et al (1987). Incluye un paladar, fragmentos del cráneo, restos del húmero y del radio, parte del fémur y de la tibia y otros restos menores. En la zona del paladar y la dentición se parece a OH 24, ER 1813 y ER 1470 más que a los australopitecinos. Sin embargo, las medidas de las partes superior e inferior del cuerpo son similares a las de los australopitecinos. Medía 1,05 m y sus brazos son muy largos en comparación a las piernas, con rasgos parecidos a Lucy. Adscrito al habilis a partir de su mandíbula y dentición.
  • OH 65. 1995. Olduvai. 1,8 Ma. Blumenschine et al (2003). Clarke (2012). Mandíbula superior completa y parte inferior de la cara. Datado en 1,8 Ma. Por sus similitudes con ER 1470, se ha sugerido que OH 65 puede reconducir a una reclasificación de los habilis. La dirección de las estriaciones dentales sugiere que perteneció a un individuo diestro lo que constituye la evidencia más temprana de lateralización (Frayer et al, 2016).
OH24. Homo habilis. Smithsonian.

Morfología

  • Capacidad craneal 610 cc (mínimo 510; máximo 824). Coeficiente de encefalización próximo a 3. 
    • Hay un aumento de la corteza cerebral, en las áreas asociativas parietales (área de Wernicke) y occipitales, sin correspondencia con el aumento corporal, obligando a producir reestructuraciones corticales importantes. El lóbulo frontal inferior (área de Broca) aumenta en superficie y complejidad.
    • Mayor irrigación sanguínea del cerebro. 
    • Cráneo más grácil: menor desarrollo de crestas musculares, anchura y altura facial más reducida, pilares faciales más ligeros. 
    • El hemisferio derecho es ligeramente mayor que el izquierdo y se extiende más hacia el polo frontal mientras que el izquierdo lo hace hacia el polo occipital. 
    • El aumento cerebral pudo deberse a una mutación en los genes reguladores (heterocronía). El aumento cerebral produjo una mayor inmadurez neurológica en los recién nacidos, alargando el tiempo de infancia. Esto condujo a una conducta social protectora. 
    • Huesos de la bóveda craneal delgados. 
    • Curvatura del hueso parietal presente en el perfil de la caja craneana mientras que en los Australopithecus está muy poco afianzada. 
    • El ángulo formado por las dos partes del hueso occipital es abierto (afilado en los australopitecos. 
    • Ausencia de cresta sagital. Huellas acusadas de las inserciones musculares en el cráneo. 
    • Foramen magnum en posición adelantada. 
    • Toro supraorbital. 
  • Escaso prognatismo. La región del mentón está retrasada. Aunque OH 7 y KNM-ER 1802 son muy similares en la forma de la arcada dental y están más cerca de OH 13 y A. afarensis que de H. sapiens y H. erectus.
    • Huesos nasales que se ensanchan inferiormente. Rebordes de la abertura nasal verticales y estrechos. 
    • Porción media de la cara relativamente estrecha, con región malar casi vertical, más desarrollada que la parte inferior.
  • Dentición. 
    • Tercer molar apenas más grande que el segundo. 
    • Del examen de los dientes de deduce un patrón de desarrollo rápido, como el de los chimpancés. 
    • Esmalte grueso. 
    • Tendencia hacia el estrechamiento bucolingual y al alargamiento mesiodistal, sobre todo en los premolares inferiores y los molares. 
  • Un metro de estatura. Peso corporal de 50 kg para los machos y 30 kg para las hembras, lo que implica un dimorfismo sexual acusado. 
  • Clavícula semejante a la de los humanos modernos. Los restos de hombros son muy escasos y sugieren que su configuración era similar a la de los homínidos tempranos. 
  • Extremidades inferiores más largas relativamente que las de los australopitecos. Pudiera ser que H. habilis retuviese las extremidades inferiores de un trepador (Groves, Stringer, Walker, R. Leakey). Últimas falanges de las manos anchas. La articulación entre pulgar y metacarpo se parece a la de sapiens. Las marcas de unión de los tendones de los músculos flexores son fuertes y las falanges son curvadas.
    • OH 7 posee falanges proximales y medias con marcada curvatura palmar, diáfisis mediolateral ampliada y fuertes flexores, lo que se asocia comúnmente con la locomoción arbórea. Además, la falange distal pollical de OH 7 también carece de un lugar de inserción para el tendón flexor largo y otras características que se relacionan con el agarre de precisión (Moyà-Solà et al, 2008). Por tanto, las falanges de OH 7 no encajan en un patrón Homo.
  • Bipedestación completa. 
  • Pie relativamente más corto como en los humanos modernos. 
    • Huesos del pie parecidos a los de humanos modernos, con un hallux corto y robusto, adducido. 
    • La articulación del tobillo difiere un tanto y el tercer metatarso parece robusto. 
    • No ha podido ser confirmada la presencia del arco longitudinal. 
    • Astrágalo diferente al patrón humano.
OH 86 views.
OH 86. De izquierda a derecha, vistas dorsal, lateral, palmar (la parte distal arriba en todos los casos) y proximal. Barra de escala, 1  cm. Domínguez-Rodrigo et al, 2015.

OH 86 y un morfo adicional en Olduvai

OH 86 es una quinta falange proximal izquierda completa recientemente hallada en Philip Tobias Korongo (PTK) en la Garganta de Olduvai (Tanzania), datada en más de hace 1,84 Ma, asociada a fauna y abundantes artefactos de piedra.

Según Domínguez-Rodrigo et al (2015), al contrario que la falange de OH 7,  OH 86 encaja en el patrón Homo. Es por consiguiente el fósil de mano más antiguo que corresponde con dicho patrón.
  • Esta hipótesis es apoyada tanto por criterios cualitativos, incluyendo la asimetría de las crestas de los flexores y la tróclea distal, así como la orientación de esta última y el contorno palmar de la base, como por criterios cuantitativos y por el análisis discriminante.
Por consiguiente, algunas morfologías de la mano "primitivas" persistieron al lado de morfologías parecidas a las del humano moderno, después de la primera aparición de herramientas de piedra y pruebas zooarqueológicas de su uso para el descarnamiento hace al menos 2,6  Ma. El nuevo fósil revela la coexistencia en Olduvai de Paranthropus boisei, Homo habilis y un morfo adicional representado por OH 86.
  • Atendiendo al tamaño de OH 86, los individuos de este morfo disfrutarían de un tamaño mucho mayor al conocido para Homo habilis, quizá en la línea evolutiva de Homo erectus.

Discusión filogenética.

  1. ¿Homo habilis es el ancestro de erectus? 
    • El hallazgo en Turkana de KNM-WT 15000, Turkana Boy datado en 1,6 Ma implica que habilis y erectus convivieron en la misma área durante medio millón de años y convierte en insostenible la secuencia habilis->erectus. OH 62 se ha datado en 1,8 Ma.
      • Para Conroy (2005) la solución es negar que OH62 pertenezca a habilis.
      • Para Arsuaga (2006) es posible que erectus descienda de una población de habilis mientras otras poblaciones permanecieron en estasis.
    • OH 86 apoya la existencia de un morfo distinto a habilis quizá en la línea evolutiva de Homo erectus.
  2. ¿Por qué ubicar los restos de Olduvai en Homo y no en Australopithecus?
    • La taxonomía toma en cuenta, por encima de cualquier otra consideración, la morfología de los especímenes y en esto se basó Leakey (rasgos craneodentales), pero estas diferencias con los australopitecinos no están claras. Con el tiempo, se ha impuesto también una identificación basada la conducta. Las diferencias entre Australopithecus y Homo son básicamente culturales:
      • la construcción de herramientas en piedra para el carroñeo, basada en la presencia de un cerebro lo bastante grande para llevar a cabo las complejas operaciones cognitivas necesarias. Estamos ante el primer homínido que fue capaza de modificar intencionalmente el entorno. Homo sería el responsable de la cultura lítica olduvaiense y H. habilis su primer representante. Habilis significa en latín: capaz, habilidoso, mentalmente desarrollado, vigoroso.
      • Cambios conductuales. Los yacimientos parecen indicar que, tras el rápido troceamiento de animales muertos con herramientas preparadas, trasladaban el botín obtenido a lugares específicos de reunión del grupo, donde se repartía. Compartir los alimentos y proteger las crías son las innovaciones conductuales más destacadas.
      • Gracias a las herramientas, el índice de eficacia en la adquisición de nutrientes es más elevado, lo que permite costear un cerebro más grande.
      • Esta interpretación está oscurecida por el hallazgo de un morfo adicional representado por OH 86, que añade incertidumbre a la autoría de las herramientas.
    • Mark Collard y Bernard Wood (1999) propusieron la categoría de Australopithecus habilis, basándose en en que su ontogenia es comparable a la de los australopitecinos, mientras que el crecimiento de Homo se extiende durante 18 años, con una infancia prolongada y una larga adolescencia.
Problemas de clasificación de Homo habilis 

Modos de Vida.

  1. Construcción de herramientas. (Cultura Olduvaiense (Modo I): Choppers (piedras cortadoras labradas por una sola cara quizá de un solo golpe preciso sobre la piedra núcleo) y lascas).
  2. Es probable una dieta con mayor contenido de carne. Omnívoro oportunista. ¿Carroñero?¿Cazador de piezas pequeñas? ¿Ambas cosas? Según Henry Bunn, en un yacimiento de la garganta de Olduvai se encontraron evidencias de caza con emboscada hace 1,6 Ma. La dieta de los primeros Homo procedía en un 35 % de hierba y juncias, en parte a través de la carne de los herbívoros (Wynn, Cerling y Sponheimer, 2013).
  3. Machacaban huesos para obtener el tuétano.
  4. Elaboración de complejas funciones cognitivas para la actuación en grupo y la enseñanza de tecnología.
Adam van Arsdale


Enlaces:

Bibliografía:
  • Blumenschine, Robert J., Ian G. Stanistreet, and Fidelis T. Masao. "Olduvai Gorge and the Olduvai Landscape Paleoanthropology Project." Journal of Human Evolution 63.2 (2012): 247-250. 
  • Tobias, Phillip V. "Encore Olduvai." Science 299.5610 (2003): 1193-1194

Te puede interesar:

miércoles, 19 de agosto de 2015

Una falange revela la existencia de una tercera especie en Olduvai, hace 1,84 Ma

Geographic location of the /`PTK/' site.
Ubicación del yacimiento Philip Tobias Korongo (PTK)
Philip Tobias Korongo (PTK) fue descubierto en 2012 por el Proyecto Paleoantropología y Paleoecología de Olduvai (TOPPP), ca 500 m al sur de FLK 22 Zinj.

Manuel Domínguez-Rodrigo, Travis Rayne Pickering, Sergio Almécija, Jason L. Heaton, Enrique Baquedano, Audax Mabulla y David Uribelarrea describen y analizan OH 86, una quinta falange proximal izquierda completa recientemente hallada Philip Tobias Korongo (PTK) en la Garganta de Olduvai (Tanzania), datada en más de hace 1,84 Ma, asociada a fauna y abundantes artefactos de piedra.

OH 86 views.
OH 86. De izquierda a derecha, vistas dorsal, lateral, palmar (la parte distal arriba en todos los casos) y proximal. Barra de escala, 1  cm.
OH 86 se diferencia no sólo de todos los australopitecinos, sino también de los huesos de las falanges de OH 7 (holotipo de Homo habilis).
  • OH 7 posee falanges proximales y medias con marcada curvatura palmar, diáfisis mediolateral ampliada y fuertes flexores, lo que se asocia comúnmente con la locomoción arbórea. Además, la falange distal pollical de OH 7 también carece de un lugar de inserción para el tendón flexor largo y otras características que se relacionan con el agarre de precisión (Moyà-Solà et al, 2008). Por tanto, las falanges de OH 7 no encajan en un patrón Homo.
  • OH 86 sí encaja por el contrario en el patrón Homo. Es por consiguiente el fósil de mano más antiguo que corresponde con dicho patrón.
    • Esta hipótesis es apoyada tanto por criterios cualitativos, incluyendo la asimetría de las crestas de los flexores y la tróclea distal, así como la orientación de esta última y el contorno palmar de la base, como por criterios cuantitativos y por el análisis discriminante.
  • Por consiguiente, algunas morfologías de la mano "primitivas" persistieron al lado de morfologías parecidas a las del humano moderno, después de la primera aparición de herramientas de piedra y pruebas zooarqueológicas de su uso para el descarnamiento hace al menos 2,6  Ma. El nuevo fósil revela la coexistencia en Olduvai de Paranthropus boisei, Homo habilis y un morfo adicional representado por OH 86.
    • Atendiendo al tamaño de OH 86, los individuos de este morfo disfrutarían de un tamaño mucho mayor al conocido para Homo habilis, quizá en la línea evolutiva de Homo erectus.
Homo habilis
El análisis de componentes principales sitúa a OH 86 en el clúster de Homo.
Curvatura de las falanges en Hominini fósiles


viernes, 7 de agosto de 2015

Hipótesis de la topografía compleja y dispersión humana

Hipótesis de la topografía compleja
Según Isabelle C. Winder et al (2013), los primeros Hominini vivieron en terrenos escarpados, variados tectónicamente, persiguiendo a sus presas por las laderas, usando las manos para agarrarse y saltando a dos patas para superar los desniveles.
La rama occidental del Rift Valley se formó hace unos 25 millones años. La formación de la grieta fragmentó la topografía, creando montañas, profundos valles y lagos. Esos nuevos y variados nichos podrían haber catalizado evolución de los primates y la especiación.

Para Isabelle C. Winder, Maud H. Deves, Geoffrey C.P. King, Geoffrey N. Bailey, Robyn H. Inglis y Matthew Meredith-Williams, la topografía compleja proporcionó una trayectoria para la evolución hacia un comportamiento totalmente terrestre en el contexto africano, proporcionando al género Homo de un conjunto de características adaptativas que facilitaron su dispersión por Europa y Asia a lo largo de terrenos de topografía compleja.
  • En particular, la combinación de brazos más cortos, postura erguida y pies arqueados se adapta bien a las exigencias de la escalada y la supervivencia en terrenos quebrados más que al desplazamiento arbóreo.
  • Las primeras especies que muestran adaptaciones claras a este nicho, son sin duda los primeros miembros del género Homo, incluyendo quizás a H. habilis y H. rudolfensis y con más certeza a H. ergaster/erectus.
  • De acuerdo con esta hipótesis, una clave para la dispersión temprana de Homo radica en la preferencia por los paisajes ásperos cercanos a terrenos más suaves que proporcionan la biomasa animal para apoyar una forma de vida predatoria. Los  terrenos quebrados proporcionan protección, ventaja táctica y alimentos alternativos.
Enlace
Out of Africa del erectus